
服务优势
● 单碱基分辨率:每个 Nm 位点落到 18S、28S、5.8S rRNA 的单个核苷酸上,不按区间推断。
● 抗切割信号读出:碱性随机断裂切开未修饰位点,2′-O-甲基化核糖抗切割,存活片段的末端即位点。
● 位点级定量:末端 reads 占该位点总 reads 的比例即甲基化比例,部分甲基化的位点保留中间值;每个位点由自身的覆盖谱评分,弱支持的位点不会混进结果。
● 无抗体化学法:位点判定取决于骨架在碱性条件下的行为,不取决于抗体结合的强弱。
● 注释完备:每个位点给出标准 rRNA 坐标、所在 rRNA 区域(18S / 28S / 5.8S)与结构区域归属。
● 坐标可比:所有项目使用同一套 rRNA 编号,多组样本可直接并排比较。
背景介绍
2′-O-甲基化(Nm)发生在核糖的 2′-羟基上,是 RNA 上最丰富的核糖修饰。在 rRNA 上由纤维蛋白(fibrillarin)在 C/D box snoRNP 中写入,每条指导 snoRNA 通过碱基配对指定要修饰的位点,因此修饰图谱跟随细胞的指导 snoRNA 谱,不单由序列决定。
甲基占据了 2′-羟基,使相邻的磷酸二酯键在碱性条件下不易水解。RiboMeth-seq 利用这一差别:RNA 被随机切断后测序,逐位点统计 5′/3′ 片段末端;Nm 位点在末端分布上表现为局部缺口,缺口深度即该位点的甲基化比例。
位点之间并不等价:解码中心、肽基转移酶中心与亚基界面的位点几乎总是被甲基化,外围位点则随细胞类型、处理与疾病状态变化。这是核糖体异质性的来源,也是本服务报比例而不报有无的原因。
关键概念:RiboMeth-seq 是一条基于碱性随机断裂的 rRNA Nm 测序路线——2′-O-甲基化核糖抗切割,未被切断的位点被保留并读出,从而在单碱基分辨率上给出每个 Nm 位点的甲基化比例。
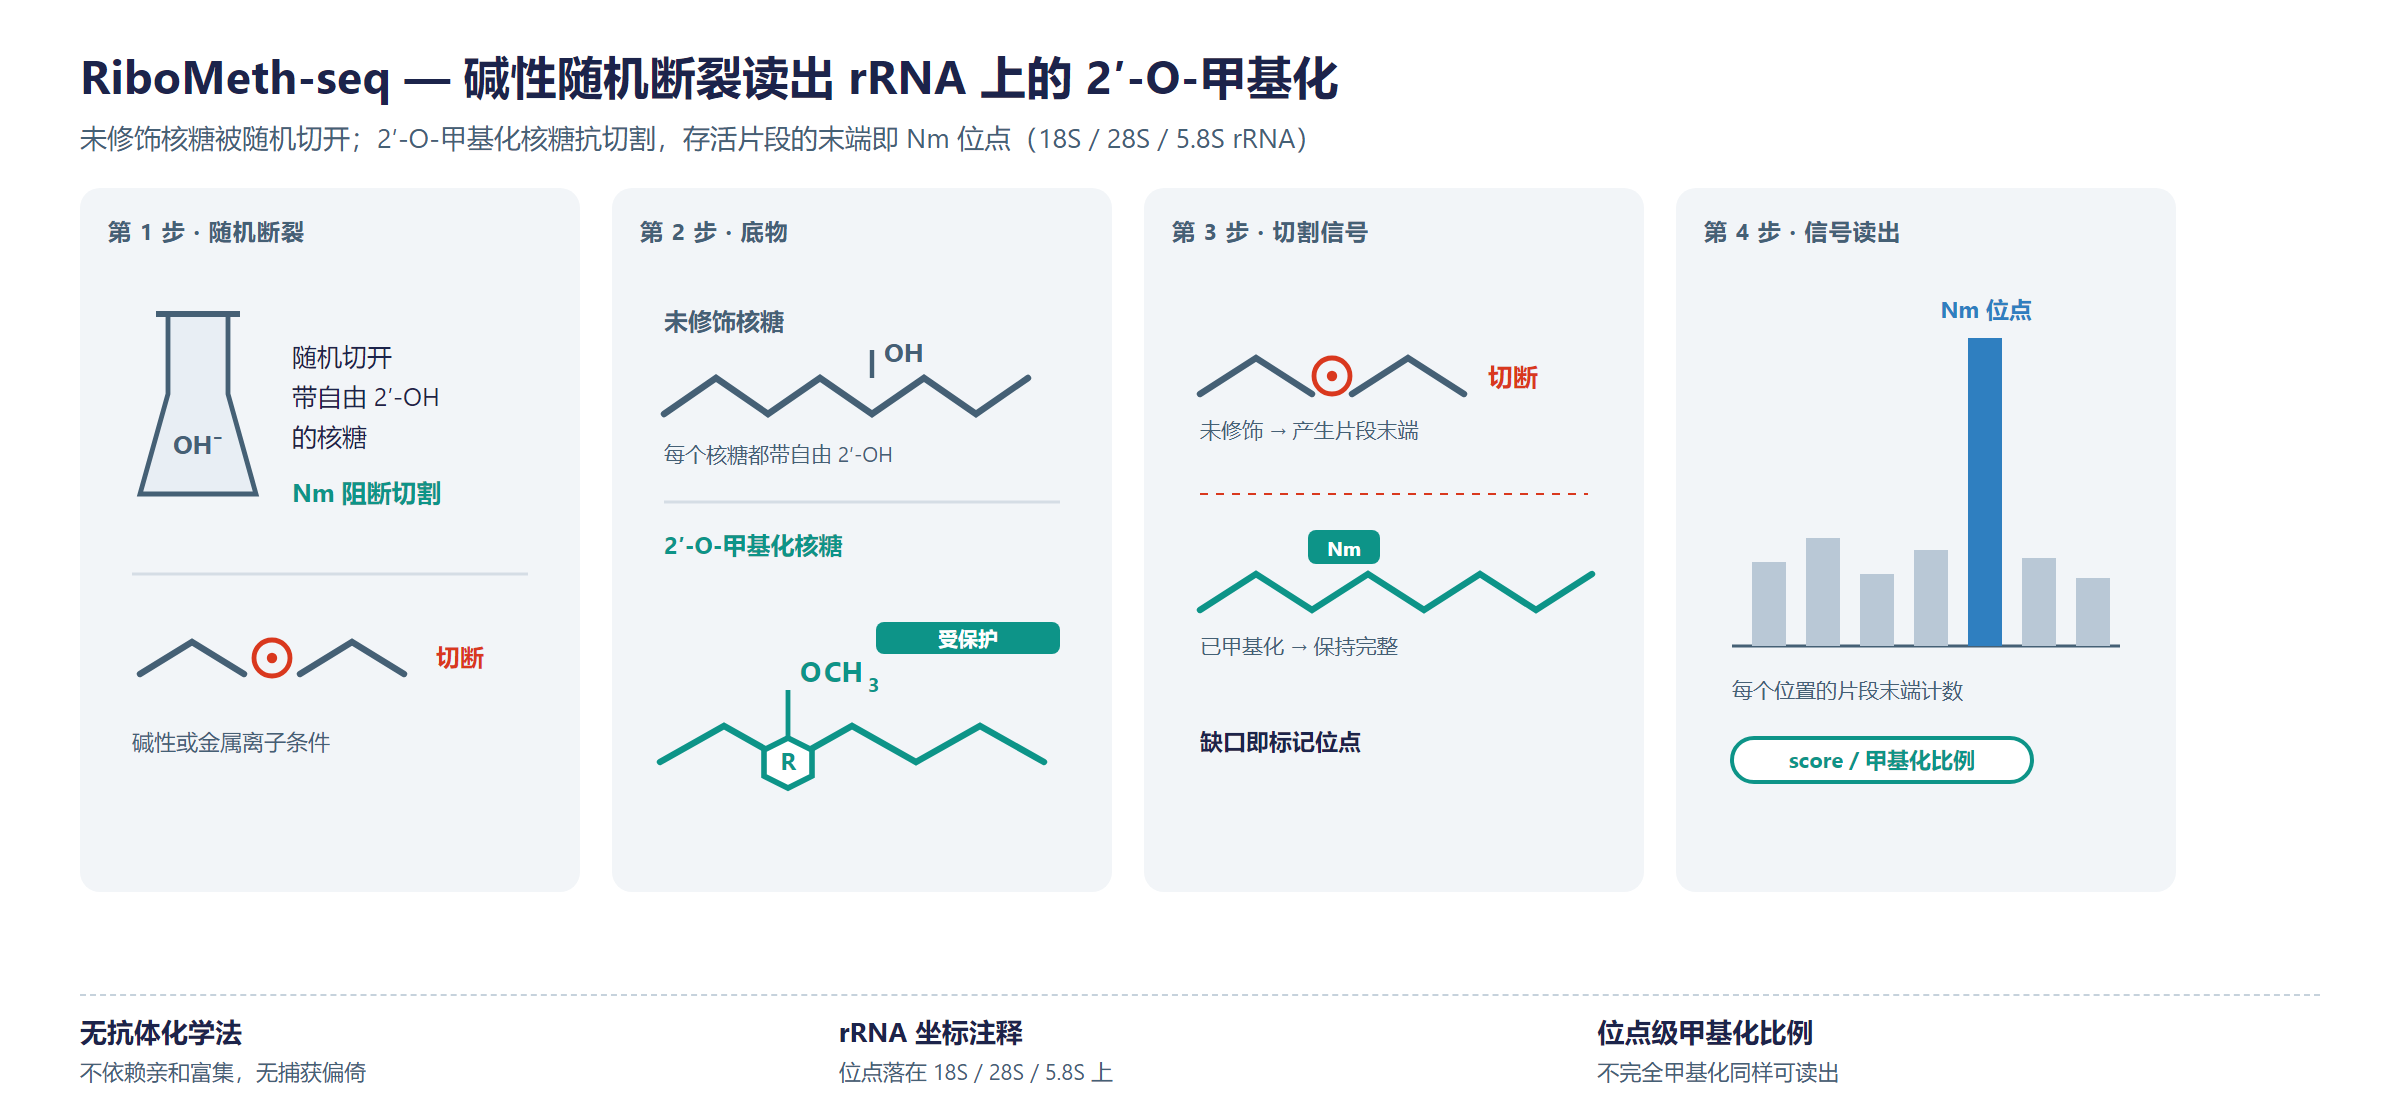
图 1. RiboMeth-seq 检测 rRNA 2′-O-甲基化的原理:碱性随机断裂切开未修饰位点,2′-O-甲基化核糖抗切割,存活片段的末端把每个 Nm 位点定位到单碱基,并给出该位点的甲基化比例。
实验流程
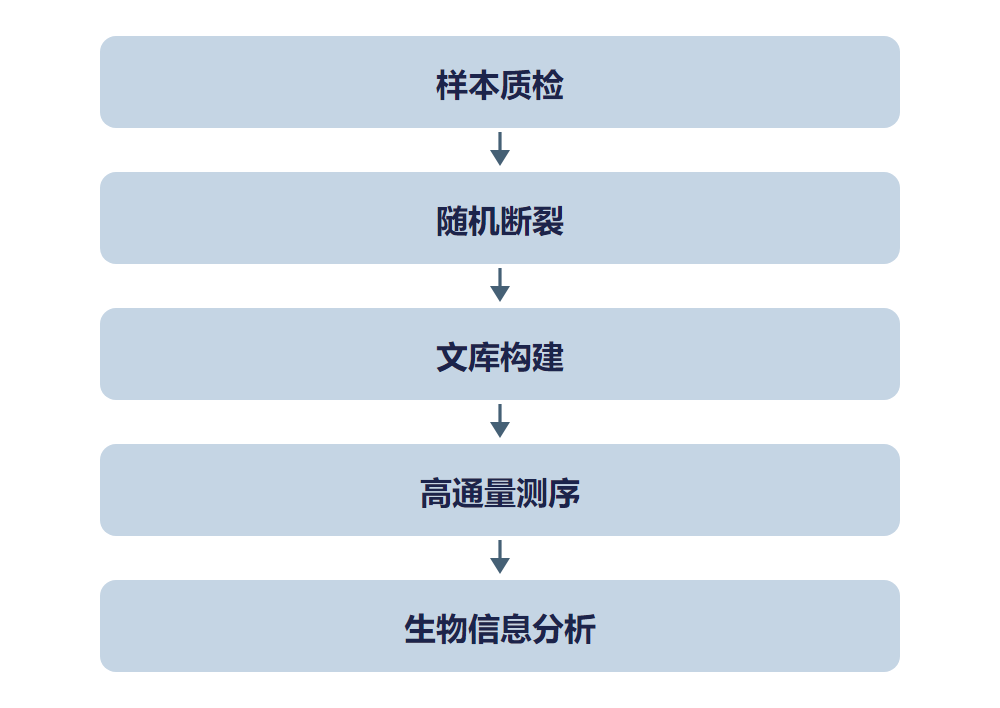
图 2. RiboMeth-seq 实验流程。
生物信息分析
比对到 rRNA 参考序列后,逐位点统计片段末端数并换算成甲基化比例,再把每个位点注释到标准 rRNA 坐标与所在结构区域。分析包含位点分布、组间差异比较与基因组浏览器可视化。
交付内容
测序原始数据(FASTQ),已按 GEO/SRA 提交格式整理。
质控与比对结果:质控报告、BAM 文件与比对统计。
单碱基 rRNA Nm 位点表:一条位点一行,含 rRNA 坐标与甲基化比例。
Nm 位点在 18S、28S、5.8S rRNA 上的分布图(PDF/PNG)。
组间差异修饰位点表,含倍数变化与显著性。
位点注释表:每个 Nm 位点对应的 rRNA 区域。
基因组浏览器信号文件(bigWig/bedGraph)与项目结题报告。
研究应用
核糖体异质性:按位点比较甲基化比例,描述组成不同的核糖体亚群。
翻译调控:把位点级甲基化与特定 mRNA 集合的翻译效率联系起来。
信号通路与癌基因:观察 rRNA 甲基化如何随上游信号变化。
发育与分化:追踪细胞状态与谱系转变过程中的 Nm 动态。
肿瘤研究:在病人样本中比较 Nm 分布,检验其与亚型、分级的关系。
修饰酶与指导 RNA:读出纤维蛋白水平或指导 snoRNA 变化对单个位点的影响。
常见问题
为什么 rRNA 是 2′-O-甲基化最集中的地方?
rRNA 上的 Nm 由纤维蛋白在 C/D box snoRNP 中写入,每条指导 snoRNA 通过碱基配对指定一个位点;rRNA 丰度高、结构稳定,位点又集中在解码中心、肽基转移酶中心与亚基界面,因此信号密集、容易判读。
碱性断裂为什么能把 Nm 位点读出来?
碱性条件下,核糖 2′-羟基自由的位点会被切断;2′-O-甲基化占据了该羟基,相邻的磷酸二酯键因此不易水解。保留下来的片段建库测序后,末端位置即 Nm 位点。
为什么报甲基化比例而不是有或无?
同一样本里,一个位点可能只在部分 rRNA 分子上被甲基化。比例反映这种不完全甲基化;这些可变位点区分了不同的核糖体群体,因此结果给出 0 到 1 之间的数值。
哪些位点会在样本之间变化?
功能中心附近的位点几乎在所有样本里都被甲基化;外围位点随细胞类型、处理条件与疾病状态变化。细胞系、发育过程与肿瘤队列的研究都报告了这种稳定核心加可变外围的分布。
这条路线和 mRNA 上的 Nm 检测是什么关系?
两者读的是同一个修饰,化学路线不同。RiboMeth-seq 用碱性随机断裂、看哪些位点抗切割,适合丰度高、结构紧密的 rRNA;转录本层面的 mRNA 或 lncRNA 则走高碘酸盐富集路线。
参考文献
Birkedal U, Christensen-Dalsgaard M, Krogh N, et al. Profiling of ribose methylations in RNA by high-throughput sequencing. Angewandte Chemie International Edition 2015. DOI: 10.1002/anie.201408362. PMID: 25417815
Marchand V, Blanloeil-Oillo F, Helm M, Motorin Y. Illumina-based RiboMethSeq approach for mapping of 2′-O-Me residues in RNA. Nucleic Acids Research 2016. DOI: 10.1093/nar/gkw547. PMID: 27302133
Sharma S, Marchand V, Motorin Y, Lafontaine DLJ. Identification of sites of 2′-O-methylation vulnerability in human ribosomal RNAs by systematic mapping. Scientific Reports 2017. DOI: 10.1038/s41598-017-09734-9. PMID: 28904332
Motorin Y, Quinternet M, Belmas E, et al. Constitutive and variable 2′-O-methylation (Nm) in human ribosomal RNA. RNA Biology 2021. DOI: 10.1080/15476286.2021.1974750. PMID: 34503375
Jansson MD, Häfner SJ, Altinel K, et al. Regulation of translation by site-specific ribosomal RNA methylation. Nature Structural & Molecular Biology 2021. DOI: 10.1038/s41594-021-00669-4. PMID: 34759377
Häfner SJ, Jansson MD, Altinel K, et al. Ribosomal RNA 2′-O-methylation dynamics impact cell fate decisions. Developmental Cell 2023. DOI: 10.1016/j.devcel.2023.06.007. PMID: 37473757
Marcel V, Kielbassa J, Marchand V, et al. Ribosomal RNA 2′O-methylation as a novel layer of inter-tumour heterogeneity in breast cancer. NAR Cancer 2020. DOI: 10.1093/narcan/zcaa036. PMID: 34316693