
服务优势
● 单碱基分辨率:C→T 出现在被羟甲基化的胞苷上,位点不需要从富集区间推断。
● 位点级定量:统计每个胞苷位点支持 T 的 reads 数,再除以该位点覆盖度,得到相对信号;部分修饰的位点保留中间值。
● 无抗体化学法:过氧钨酸盐氧化 hm⁵C,在所用条件下,未修饰 C 和 m⁵C 基本不被氧化。总 RNA 可直接使用,不经过免疫沉淀;抗体富集的结合偏好被避开,其他偏差仍然存在。
● 反应条件温和:不使用亚硫酸氢盐的酸碱处理。
● 注释完备:位点注释到转录本和转录本区域。
● 项目内完成:样本质检、氧化、建库、测序和数据分析在同一项目内完成。
背景介绍
TET 酶已被证明可在 RNA 上把 m⁵C 氧化为 hm⁵C。RNA hm⁵C 已在翻译、神经生物学和发育研究中被关注;其分布和功能仍在研究中,哺乳动物样本中的含量较低。
常规亚硫酸氢盐测序不能可靠区分 hm⁵C 和 m⁵C。未修饰胞苷脱氨后读作 T,m⁵C 和 hm⁵C 都可能抗脱氨,读作 C。处理过程需要酸碱循环,会降解 RNA;双链区转化不完全时还会出现假阳性。
WO-Seq 用氧化反应代替脱氨。过氧钨酸盐把 hm⁵C 氧化为 thT。该反应在单链核酸上进行得较好,在双链 DNA 中效率较低。RNA 并非完全单链,二级和三级结构会影响部分位点的氧化效率。TGIRT 把 thT 读作 T;在所用条件下,未修饰 C 和 m⁵C 基本不被氧化。
氧化和逆转录不一定完全,T reads 还包含背景错配和测序错误。报告值是相对 hm⁵C 相关 C→T 信号,不是绝对修饰比例,适合比较用同一流程处理的样本。一个位点能否判定,取决于该位点的覆盖度;检出灵敏度还取决于 RNA 丰度、结构环境和转化效率。
关键概念:WO-Seq 是一种免亚硫酸氢盐的 hm⁵C 单碱基测序方法。在验证过的反应条件下,过氧钨酸盐把 hm⁵C 氧化为 thT,TGIRT 把 thT 读作 T,C→T 改变标出 hm⁵C 的位置。
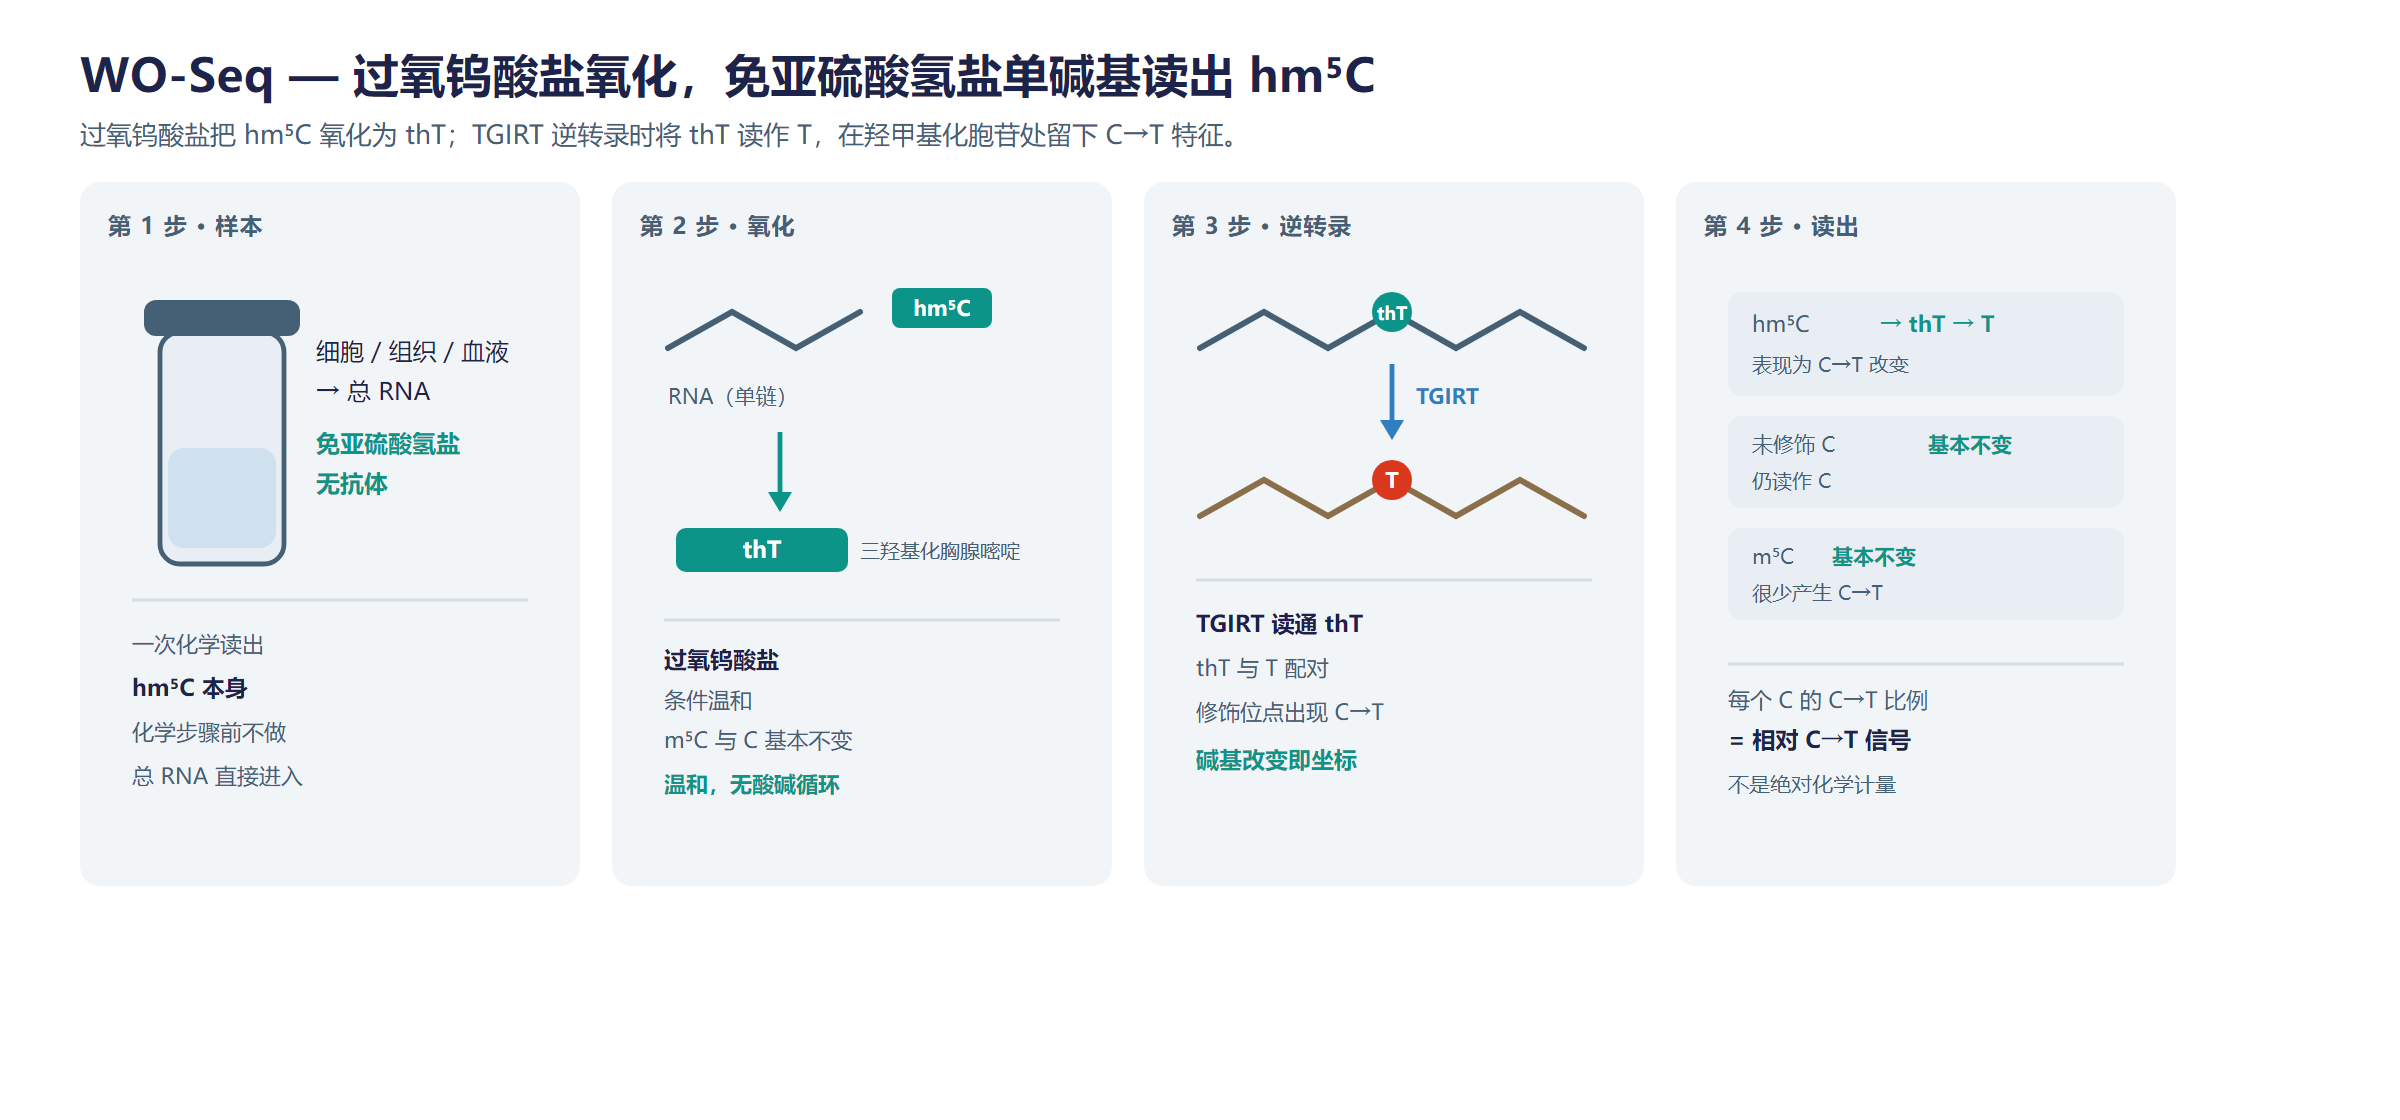
图 1. WO-Seq 检测原理。过氧钨酸盐把 hm⁵C 氧化为 thT,未修饰 C 和 m⁵C 基本不变;TGIRT 把 thT 读作 T,C→T 改变标出 hm⁵C 位点。
实验流程
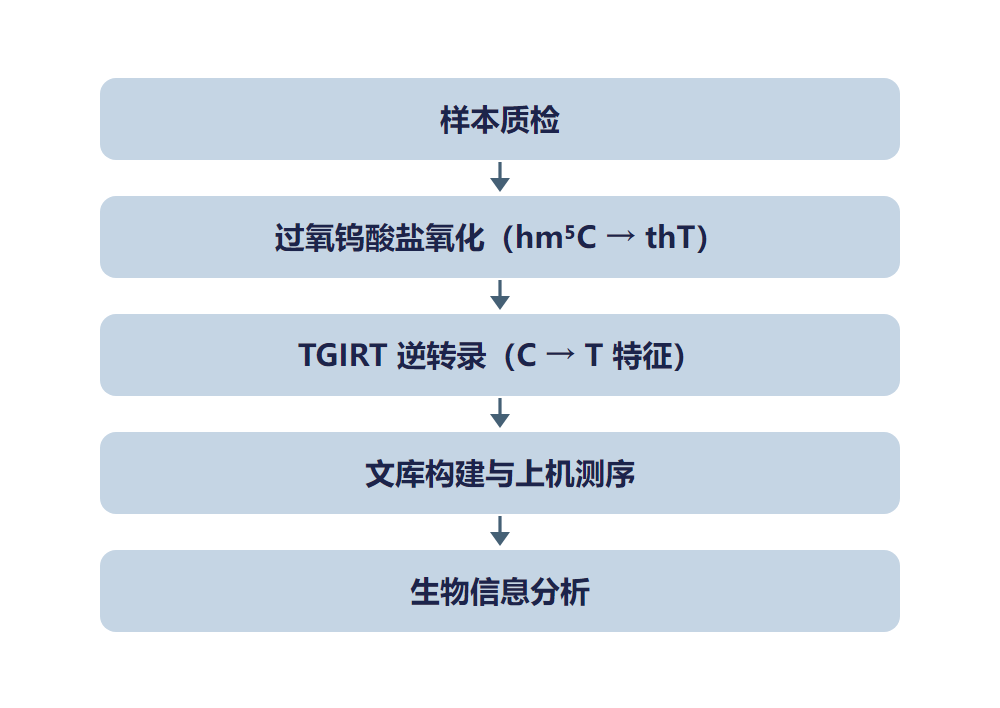
图 2. WO-Seq 实验流程。
生物信息分析
比对后,统计每个胞苷位点支持 T 的 reads 数。候选位点按覆盖度和局部背景筛选;同一转录本上的其他胞苷不默认视为未修饰,所用阈值写入项目报告。组间比较考虑覆盖度和背景,统计检验需要生物学重复。分析包括位点注释和 C→T 信号轨道。
交付内容
原始测序数据(FASTQ),按 GEO/SRA 格式整理。
质控报告、BAM 文件和比对统计。
hm⁵C 位点表(XLSX),含坐标、转录本和相对 C→T 信号。
每个位点的 C→T reads 数与覆盖度表(XLSX)。
C→T 图谱和位点分布图(按转录本区域,PDF/PNG)。
组间差异 hm⁵C 相关信号表(XLSX),含倍数变化和显著性。
基因组浏览器轨道文件(bigWig/bedGraph)和项目报告。
研究应用
TET 相关研究:比较 TET 缺失、过表达或抑制样本中的 hm⁵C 位点。
翻译研究:把位点水平与核糖体占据、翻译效率一起分析。
发育与神经生物学研究:在分化和相关模型中观察 hm⁵C 的变化。
低丰度样本:抗体富集困难时,可用化学法直接检测 hm⁵C。
肿瘤与疾病模型:比较肿瘤和正常组织、或不同亚型之间的位点谱。
方法比较:与同一批样本的 hMeRIP-seq 或亚硫酸氢盐数据比较。
常见问题
为什么不用亚硫酸氢盐测 hm⁵C?
常规亚硫酸氢盐测序不能可靠区分 m⁵C 和 hm⁵C,因为两者都可能抗转化并读作 C。处理还需要酸碱循环,会降解 RNA;双链区转化不完全时会出现假阳性。WO-Seq 直接氧化 hm⁵C,未修饰 C 和 m⁵C 基本不被氧化。
如何区分 hm⁵C 和 m⁵C?
过氧钨酸盐氧化 hm⁵C,m⁵C 基本不被氧化。TGIRT 把氧化产物 thT 读作 T,所以 hm⁵C 位点出现 C→T;m⁵C 位点通常仍读作 C,与未修饰胞苷相同。
C→T 比例是绝对修饰比例吗?
不是。氧化和逆转录不一定完全,T reads 还包含背景错配和测序错误。C→T 信号是相对值,适合比较用同一流程处理的样本。绝对比例需要校准方法和内参。
位点是怎么判定的?
候选位点按覆盖度和局部背景筛选;同一转录本上的其他胞苷不默认视为未修饰。所用阈值写入项目报告,候选位点可以独立复核。覆盖度决定判定强度。
这项服务能支持哪些研究?
可以比较 TET 缺失、过表达或抑制样本中的 hm⁵C 位点;比较正常与疾病样本;也可以把位点水平与核糖体占据、翻译效率一起分析。位点直接落在胞苷上,适合跟踪具体位置的变化。
部分修饰的位点如何报告?
报告相对信号,不报有或无。hm⁵C 较多的位点通常信号较高;只在部分分子上带 hm⁵C 的位点,信号介于背景和方法可达上限之间,可用于组间比较。
参考文献
Yuan F, Bi Y, Siejka-Zielinska P, et al. Bisulfite-free and base-resolution analysis of 5-methylcytidine and 5-hydroxymethylcytidine in RNA with peroxotungstate. Chemical Communications 2019;55:2328-2331. DOI: 10.1039/C9CC00274J. PMID: 30723849
Delatte B, Wang F, Ngoc LV, et al. Transcriptome-wide distribution and function of RNA hydroxymethylcytosine. Science 2016;351:282-285. DOI: 10.1126/science.aac5253. PMID: 26816380
Fu L, Guerrero CR, Zhong N, et al. Tet-mediated formation of 5-hydroxymethylcytosine in RNA. Journal of the American Chemical Society 2014;136:11582-11585. DOI: 10.1021/ja505305z. PMID: 25073028
Okamoto A, Sugizaki K, Nakamura A, et al. 5-Hydroxymethylcytosine-selective oxidation with peroxotungstate. Chemical Communications 2011;47:11231-11233. DOI: 10.1039/c1cc14782j. PMID: 21918786
Hayashi G, Koyama K, Shiota H, et al. Base-resolution analysis of 5-hydroxymethylcytosine by one-pot bisulfite-free chemical conversion with peroxotungstate. Journal of the American Chemical Society 2016;138:14178-14181. DOI: 10.1021/jacs.6b06428. PMID: 27766835