什么是 tRNA 单碱基修饰图谱
tRNA 是细胞内修饰最密集的 RNA 之一,修饰分布在不同结构域:D 环、反密码子环、可变环与 TΨC 环各有一套。主体上的修饰主要影响折叠、稳定性与刚性,反密码子环上的修饰则影响解码准确性、翻译速率与移码控制——位点不同,功能后果也不同。
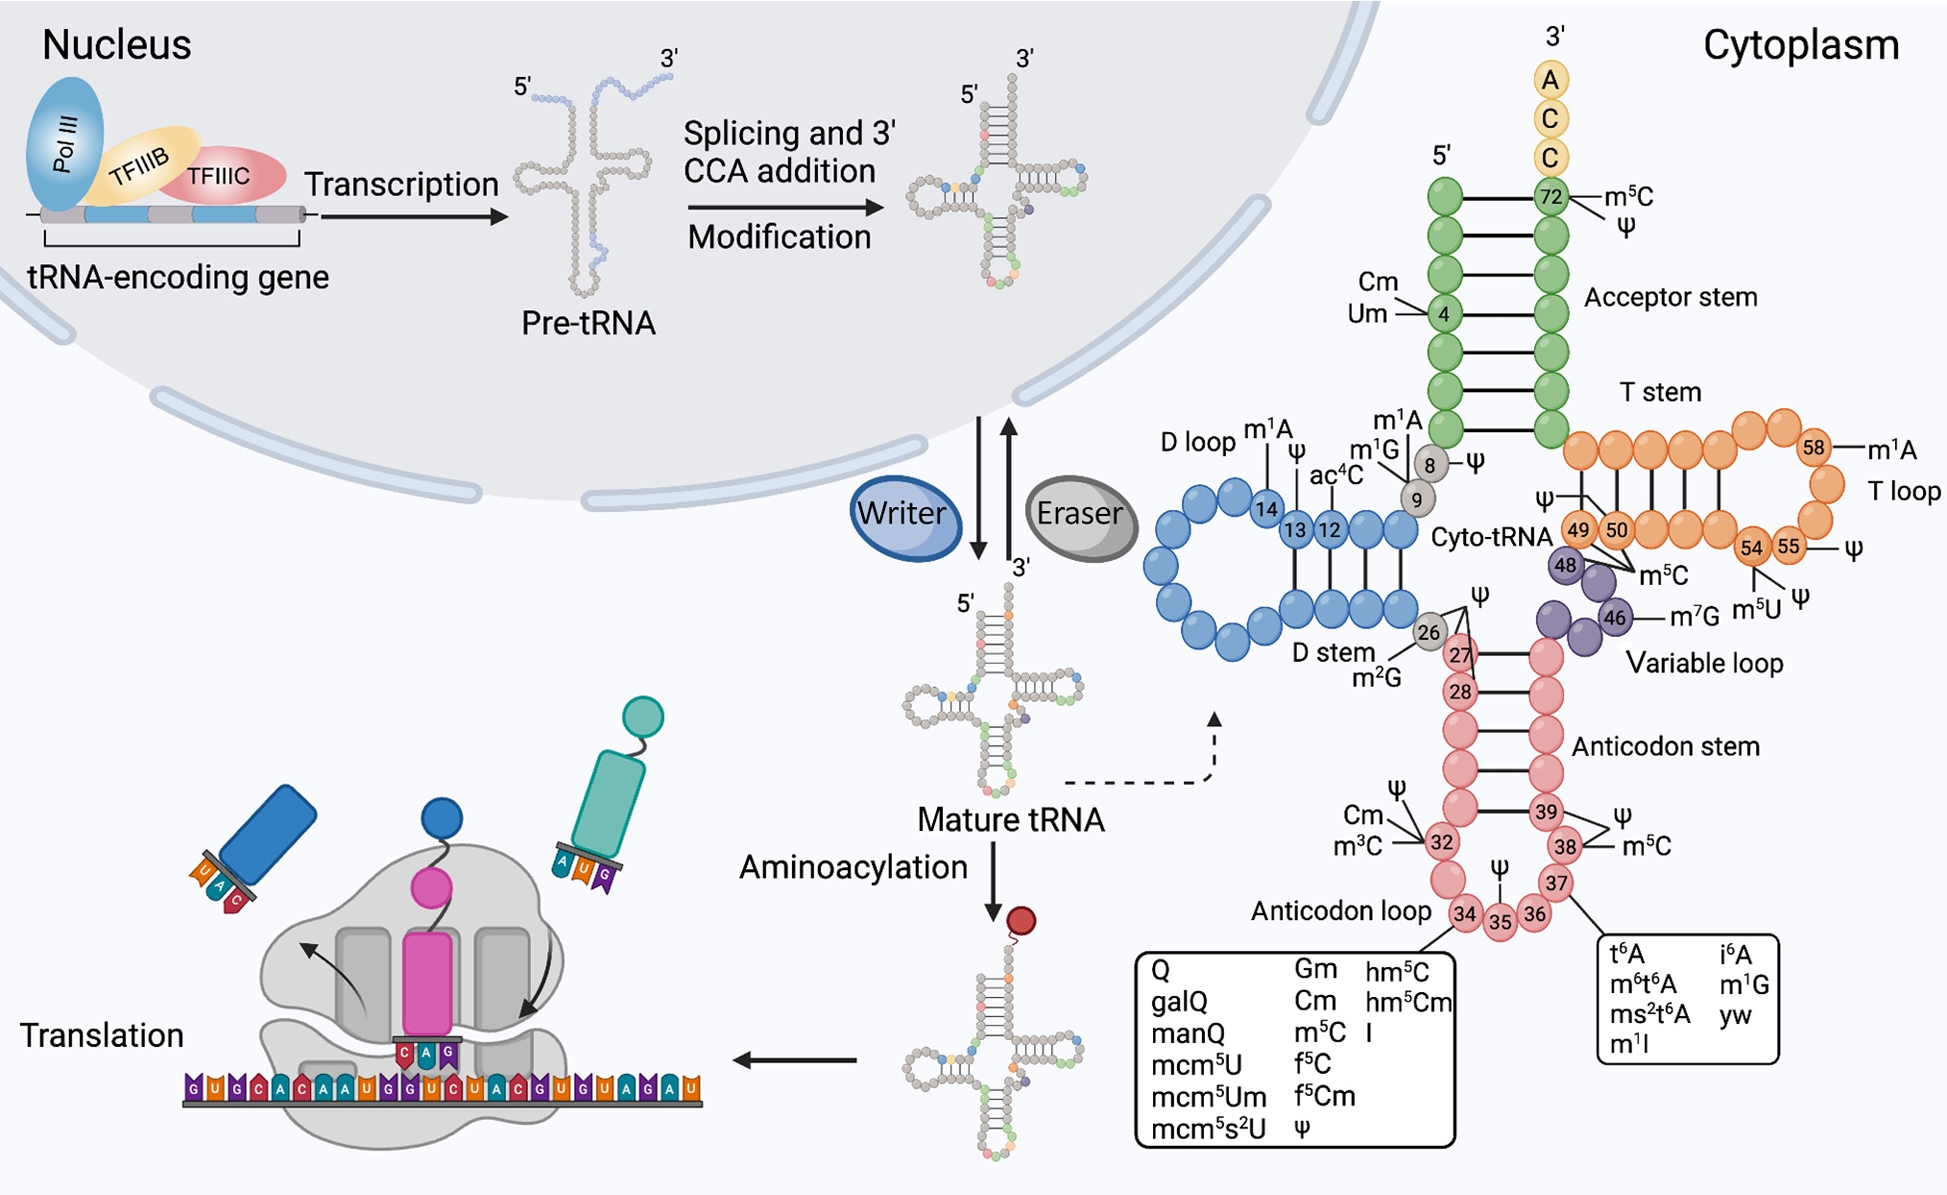
在机制研究里,单碱基分辨率的定位与定量是绕不开的一步:只有拿到"哪一个 tRNA、哪一个碱基被修饰、比例是多少",才能把修饰与 tRNA 的稳定性、氨酰化状态、密码子识别和翻译效率对应起来,回答"修饰通过哪个环节影响功能"。整体修饰谱(LC-MS)适合先做一次快速评估,靶标验证(qPCR 与芯片)适合在更大样本中确认关键位点——两者都围绕位点级结果展开。
本页汇总的就是位点级这一层:8 类修饰、9 种检测方法,逐类说明研究价值与对应的检测路线。
修饰类型一览
按修饰所在的化学基团分组;同一类修饰可以有多种检测路线,分辨率与适用场景略有差别。
| 修饰 | 所在碱基 | 典型位置与作用 | 检测方法 |
|---|---|---|---|
| m¹AN1-甲基腺苷 | 腺苷 A | 第 9、14、58 位等保守位点;稳定 tRNA 结构 | m1A-Quant-seq、tRNA 多修饰测序 |
| m³C3-甲基胞苷 | 胞苷 C | 反密码子环第 32 位;维持结构、解码准确性与翻译效率 | HAC-Seq、m3C-IP-Seq、tRNA 多修饰测序 |
| m⁵C5-甲基胞苷 | 胞苷 C | 反密码子环与可变环的经典位点;影响 L 形折叠与解码 | BS-seq |
| ac⁴CN4-乙酰胞苷 | 胞苷 C | 与 L 形折叠、反密码子—密码子解码相关的位点 | RedaC:T-seq |
| m⁷GN7-甲基鸟苷 | 鸟苷 G | 可变环第 46 位等;维持结构完整性并影响翻译效率 | TRAC-Seq、m7G-Quant-Seq |
| Ψ假尿嘧啶 | 尿苷 U | D 环、反密码子环、TΨC 环与氨基酸接受臂 | BID-seq、BACS-seq |
| D二氢尿苷 | 尿苷 U | 第 16、17、20 位等经典位点;稳定 L 形折叠 | CRACI-seq |
| Nm2′-O-甲基化 | 核糖 2′-OH | 反密码子环与 TΨC 环等区域;影响结构稳定与识别 | NM-seq |
各类修饰与对应服务
HAC-Seq · m3C-IP-Seq
研究价值:m³C 维持 tRNA 的结构稳定,修饰缺失会直接触发 tRNA 剪切并释放 tsRNA——是连接 tRNA 质量控制与免疫微环境、衰老及肿瘤表型的关键机制。
TRAC-Seq · m7G-Quant-Seq
研究价值:m⁷G 由 METTL1/WDR4 复合体催化,选择性提升致癌 mRNA 的翻译效率,是连接表观遗传与肿瘤恶化的关键枢纽——为肿瘤与干细胞研究提供了翻译层面的切入点。
方法选择建议
按研究问题选方法:单碱基分辨率的定位与定量是主线,其余路线用于前期评估或后期确认,多数课题会组合两到三种。
| 研究问题 | 推荐路线 | 为什么 |
|---|---|---|
| 要定位某个修饰在哪些位点、比例多少 | 对应的单碱基测序 | 还原性切割、肼-苯胺切割、亚硫酸氢盐、化学标记等原理各自对应一类修饰 |
| 弱位点、低丰度样本 | 抗体富集路线(如 m3C-IP-Seq) | 先富集含修饰的片段,再做转化读出,提高弱位点的检出率 |
| 一次看多类甲基化修饰 | tRNA 多修饰测序(m¹A / m³C / m¹G / m²,²G) | 四类修饰都会破坏碱基配对,通过统计逆转录错配位点一次判定 |
| 还不确定该看哪一类修饰,想先做一次筛选 | mim-tRNA-Seq(tRNA 氨酰化测序) | 一次测序同时给出表达水平、氨基酸负载比例与修饰位点预测,先圈定重点修饰再选单碱基方法 |
| 要看多种 small RNA 的修饰水平,但不需要单碱基位点 | small RNA 修饰芯片(o⁸G / m⁷G / m⁶A / m¹A / Ψ / m⁵C,每次一种修饰) | 直接 RNA 末端标记定量,不受逆转录与 PCR 扩增偏倚影响,低丰度 small RNA 也能测;覆盖 miRNA、pre-miRNA、tRNA 与 tRF&tiRNA,但只给修饰水平、不定位到单碱基 |
| 先看样本的修饰"整体格局" | LC-MS tRNA 修饰检测 | 一次给出 55 种核苷修饰的相对丰度,适合先判断样本之间是否有差异 |
| 已有候选位点,要大样本确认 | tRNA-qPCR 或 tRNA PCR 芯片 | 针对单个靶标或一批 tRNA 做定量验证,成本与周期更可控 |
实验与数据分析流程
不同修饰的处理步骤不同,但从样本到结果的流程一致:先质检,再按目标修饰做化学处理,随后建库测序、判定位点并做定量与统计。
交付内容
以位点表为核心,配套质控、分布与差异结果:
- 原始测序数据(FASTQ),可直接提交 GEO / SRA 等公共数据库
- 比对文件与关键比对指标的质控报告
- 单碱基位点表(XLSX):位点坐标、成熟 tRNA 相对坐标、反密码子、isoacceptor 与修饰水平
- 修饰在各类 tRNA 与各结构域的分布图、一致性 motif 分析图(PDF / PNG)
- 组间差异修饰位点表(XLSX)与统计信息
- 兼容基因组浏览器的信号文件(bigWig / bedGraph)与结构化 tRNA 报告
研究应用
位点级修饰结果可以直接落到下面这些研究场景:
结构—功能关联
把修饰位点与 tRNA 的稳定性、折叠状态、氨酰化水平放在一起解读
翻译保真度与效率
修饰影响解码准确性与翻译速率,位点级数据可以追到具体的密码子
肿瘤与疾病机制
m⁷G、m³C 等修饰在肿瘤发生发展中的作用已有报道,位点数据可用于机制研究
干细胞与发育
修饰状态与干细胞自我更新、谱系分化相关,适合做条件比较
多修饰联合
同一批样本可并行安排多种修饰检测,观察修饰之间的协同或竞争
与氨酰化数据整合
位点级修饰可与 tRNA 氨酰化测定并列解读,串起"修饰—装载—翻译"
常见问题
单碱基测序和 LC-MS 应该怎么选?
同一份样本可以同时做多种修饰吗?
为什么不同修饰要用不同的化学方法?
抗体富集法与化学法怎么取舍?
结果里的每个位点能看到什么信息?
参考文献
- [1] Li X, Xiong X, Zhang M, et al. Base-resolution mapping reveals distinct m1A methylome in nuclear- and mitochondrial-encoded transcripts. Molecular Cell 2017;68(5):993-1005. PMID: 29107537
- [2] Gao Y, Hou J, Wei S, et al. Transcriptome-wide mapping of N3-methylcytidine modification at single-base resolution. Nucleic Acids Research 2025;53(5). DOI: 10.1093/nar/gkaf153
- [3] Frommer M, McDonald LE, Millar DS, et al. A genomic sequencing protocol that yields a positive display of 5-methylcytosine residues in individual DNA strands. PNAS 1992;89(5):1827-1831. DOI: 10.1073/pnas.89.5.1827
- [4] Arango D, Sturgill D, Yang R, et al. Direct epitranscriptomic regulation of mammalian translation initiation through N4-acetylcytidine. Molecular Cell 2022;82(15):2797-2814.e11. DOI: 10.1016/j.molcel.2022.05.016
- [5] m7G-quant-seq: Quantitative detection of RNA internal N7-methylguanosine. ACS Chemical Biology 2022;17(12). DOI: 10.1021/acschembio.2c00792. PMID: 36398936.
- [6] Dai Q, Zhang LS, Sun HL, et al. Quantitative sequencing uncovers abundant pseudouridines in mammalian mRNA at base resolution. Nature Biotechnology 2023;41(3):344-354. DOI: 10.1038/s41587-022-01505-w
- [7] Ju CW, Li H, Jiang B, et al. Quantitative CRACI reveals transcriptome-wide distribution of RNA dihydrouridine at base resolution. Nature Communications 2025;16(1):8863. DOI: 10.1038/s41467-025-63918-w
- [8] Dai Q, Moshitch-Moshkovitz S, Han D, et al. Nm-seq maps 2'-O-methylation sites in human mRNA with base precision. Nature Methods 2017;14(7):695-698. DOI: 10.1038/nmeth.4294. PMID: 28504680