近年来的研究表明,tRNA 还能作为小非编码 RNA(sncRNA)的主要来源之一,具有独特且多样的功能。 参考文献 [1]
本文要点:近年来的研究表明,tRNA 还能作为小非编码 RNA(sncRNA)的主要来源之一,具有独特且多样的功能。
数谱生物提供 tRF&tiRNA 测序与 PCR 芯片、qPCR 以及配套预处理试剂等技术服务。
概述
tRNA 的本职工作是解码 mRNA、把氨基酸送进核糖体。近年的研究揭示出它的另一重身份:tRNA 是小非编码 RNA(sncRNA)的重要来源之一,由此产生的一批分子功能独特而多样 [1]。这些 tRNA 来源的 ncRNA 并不是随机降解的废料,它们的生成走的是精确的生物发生路径(图1)。按分子大小、核苷酸组成、生理功能与生成方式来划分,它们主要归入两大阵营——tiRNA(tRNA halves)与 tRF(tRNA 衍生片段)[1-3]。
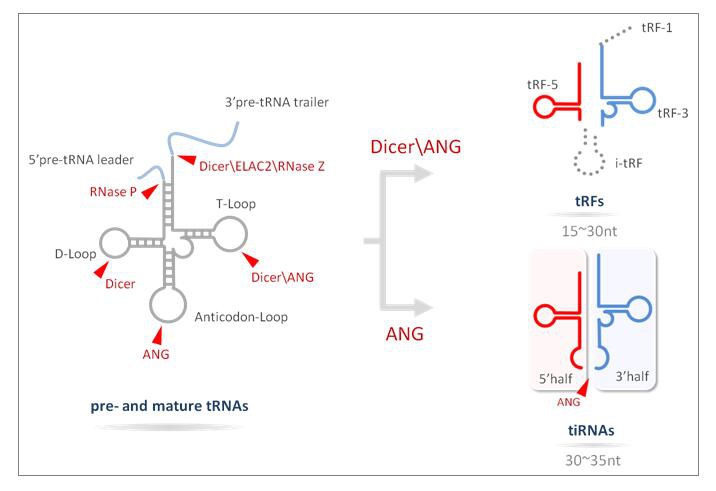
图1. tRF&tiRNA的生物发生过程。tRF-1产生于前体tRNA的3’尾端序列。tRF-5,i-tRF和tRF-3分别起源自成熟tRNA的5’、内部、和3’端。当切割发生在成熟tRNA反密码子环,将产生两个半分子,tiRNAs,包括5’-tRFs和3’-tRFs。
tiRNA 的生成往往发生在应激状态下:成熟 tRNA 的反密码子环被 angiogenin(ANG)定点切开,得到 5′ 与 3′ 两个半分子,长度多在 29–50 nt。tRF 更短,约 16–28 nt,来源既可以是成熟 tRNA,也可以是前体 tRNA。依据片段在 tRNA 上的位置,tRF 又分为四型:tRF-5 取自成熟 tRNA 的 5′ 端,切割位点在 D-loop;tRF-3 取自成熟 tRNA 的 3′ 端并带有 CCA 部分,切割位点在 T-loop;tRF-1 来自前体 tRNA 的 3′ 尾巴,末端带多聚 U;剩下的 i-tRF 归为第四型,主要出自成熟 tRNA 的中间区域。
生物学功能
作为一类 sncRNA,tRF 与 tiRNA 承担的工作相当多样(图5)。它们可以充当 miRNA 执行 RNA 干扰(图2);可以顶替翻译起始因子 eIF4G 与 mRNA 的结合位置,把蛋白翻译直接按住 [4, 5];可以与 YBX1 这类蛋白因子结合,左右 mRNA 的稳定程度(图3);也可以与细胞色素 C 打交道,参与凋亡调控 [6]。细胞遇到应激时(图4),它们会去推动应激颗粒(Stress Granules, SGs)的形成,让细胞对氧化应激诱导的 p53 激活以及随后 p53 依赖的死亡更敏感 [7]。另有一部分分子能进入父代生殖细胞,以表观遗传因子的身份改变子代的基因转录级联(图6)[8, 9]。
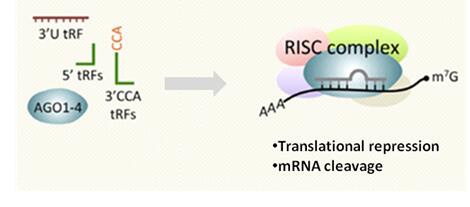
图2. tRFs具有许多microRNA的功能特性,例如,Dicer依赖的生物发生,与Argonaute蛋白形成RISC复合体以及RNA沉默。某些收录的miRNA直接与tRFs匹配10。
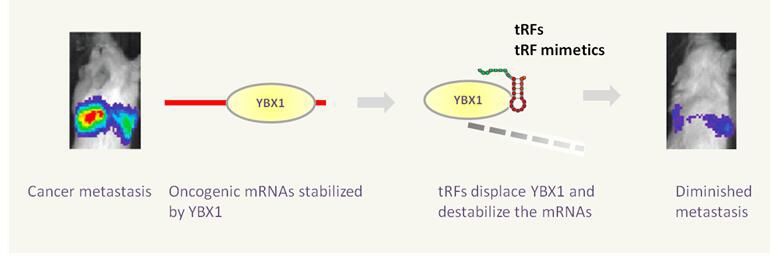
图3. tRFs或者其类似物替换肿瘤基因mRNA结合蛋白YBX1,使许多促癌基因mRNA不稳定,进而癌细胞的浸润性被显著抑制11。
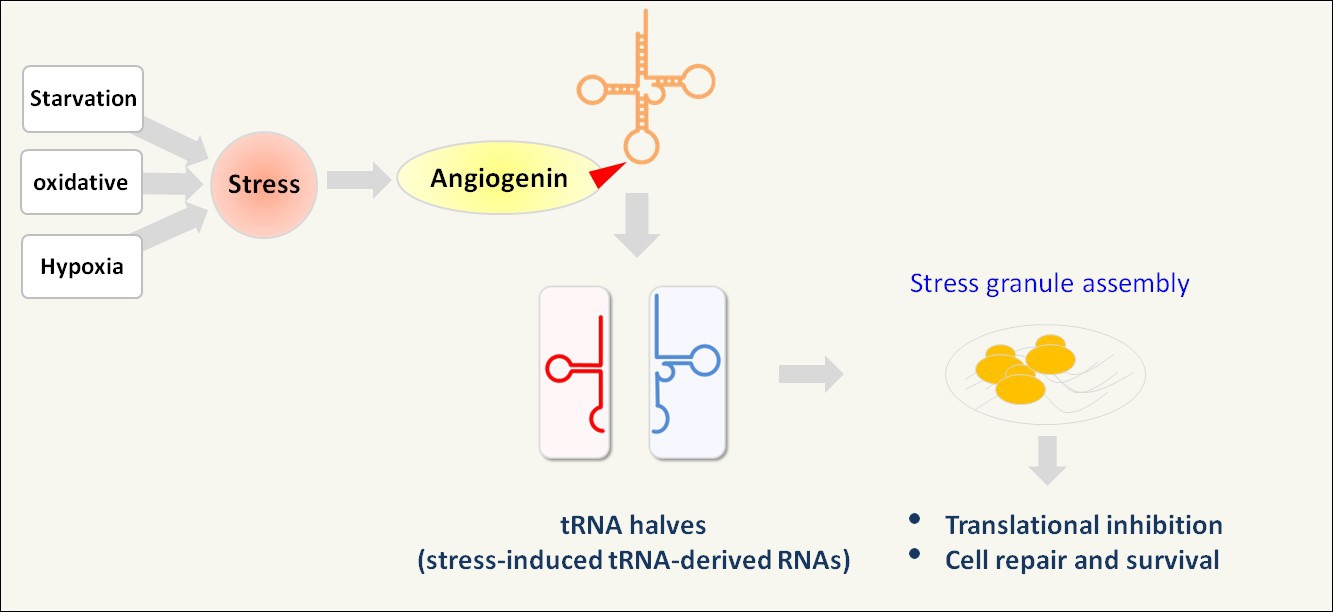
图4. 在细胞应激条件下,tRNA halves (tiRNAs)由angiogenin 切割tRNA产生,随后促进Stress Granules (SGs)的组装,诱导翻译抑制,细胞修复和存活12。
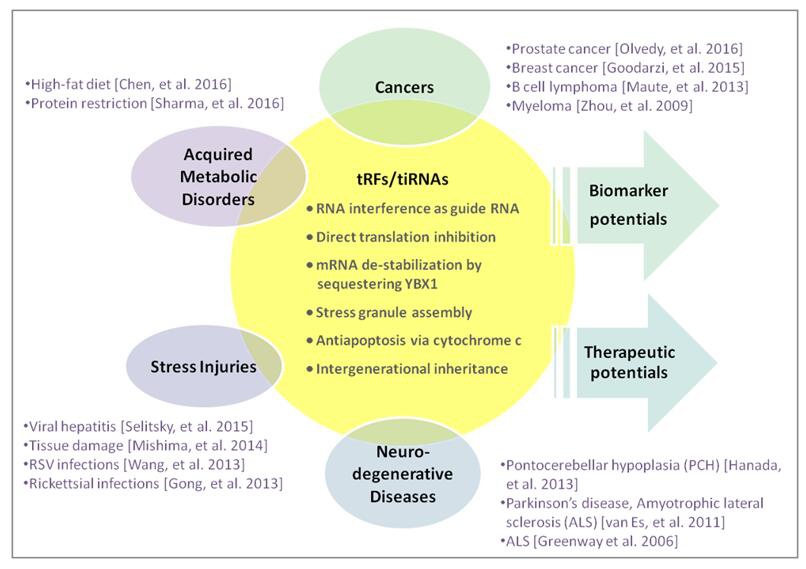
图5. tRFs&tiRNAs分子功能和人类疾病。
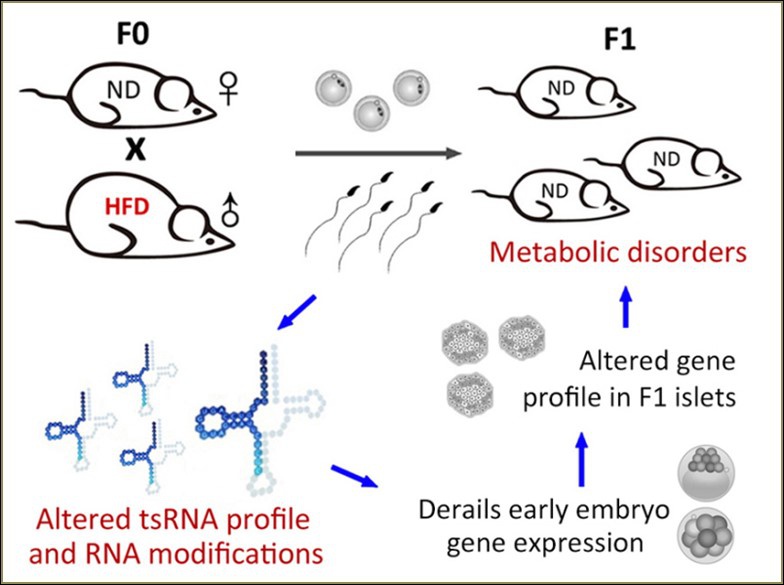
图6. 高脂饮食(HFD)小鼠精子中tRNA来源的小RNA tRFs&tiRNAs,主要是tRNA halves)具有变化的表达谱和RNA修饰。通过受精卵注射技术,tRFs&tiRNAs赋予了子代代谢疾病表型。这些表观遗传因子通过改变从胚胎到成年的基因级联转录过程来介导亲本到子代的遗传过程8。
与人类疾病的关系
癌症、神经退行性疾病、遗传性代谢疾病等病理状态都与 tRF&tiRNA 存在关联,某些场景下它们本身就是致病因素(图5)。
癌症。前列腺癌细胞系 LNCaP、C4-2 等模型里都能看到 tRF&tiRNA 的差异表达;缺氧这类氧化应激条件会把它们的水平推高 [13]。B 细胞淋巴癌细胞系中发现的一种 tRF-3 带有前导 RNA 的特性,按 miRNA 的套路抑制增殖并调控 DNA 损伤应答 [14]。另有研究显示,tRF&tiRNA 会去争夺 YBX1 的结合位点,让肿瘤基因的转录产物变得更不稳定,因而扮演肿瘤抑制物 [11](图3)。tRF-1001 属于 tRF-1,由 tRNA-Ser 前体加工而来;它在多个癌细胞系中高表达,而且是前列腺癌细胞增殖不可缺少的分子 [15]。ANG 切出的 tiRNA 会帮助应激颗粒组装,使细胞在恶劣条件下存活,研究者推测这条路径直接服务于 ANG 介导的血管生成与癌细胞增殖。同样地,tiRNA 还能结合细胞色素 C,替癌细胞挡掉凋亡 [6]。这些线索合在一起,把 tRF&tiRNA 放在了肿瘤发生的关键位置上。
获得性代谢疾病。子代的代谢疾病,有时要追溯到亲代的饮食习惯。父本高脂饮食(HFD)小鼠模型里,精子中存在一批主要来自 tRNA 5′ 端、长度 30–34 nt 的 tRF&tiRNA;高脂饮食改变的不仅是它们的表达量,还有其上的 RNA 修饰。把这部分组分从 HFD 小鼠精子中取出、注入正常受精卵,F1 小鼠会出现代谢疾病,早期胚胎与胰岛细胞的代谢通路基因表达谱随之改变,而 CpG 富集区的 DNA 甲基化机制并未参与其中。可见精子 tRF&tiRNA 属于一类亲本表观遗传因子,把饮食诱导的代谢疾病传递给子代 [8](图6)。另一个实验里,限制小鼠的饮食蛋白水平会改变成熟精子的小 RNA 组成:let-7 减少,甘氨酸 tRNA 来源的 5′ 端 tRF&tiRNA 增多。这类分子被认为在着床前胚胎的转录组调控中承担内源逆转录驱动的角色 [9]。
神经系统病变。神经系统病变中有不少病例源自 tRNA 代谢或 tRNA 加工酶的缺陷。一个 RNA 酶活性下降的 ANG 突变体,就与致死性神经退行性疾病肌萎缩侧索硬化(ALS)的病理过程挂上了钩 [16];另一类 ALS 相关的 ANG 突变,在帕金森病(PD)病人身上也能找到 [17]。研究推进至今,ANG 切出的 tRNA halves 与细胞应激、神经发育疾病之间的关联被不断加强 [18]。CLP1 是另一个例子:它的 RNA 激酶活性一旦丧失,一种加工异常的酪氨酸 tRNA 前体来源小片段就会堆积,细胞对氧化应激诱导的 p53 激活与 p53 介导的神经细胞死亡变得敏感,最终表现为运动神经元丢失、肌肉去神经化和呼吸衰竭 [7]。5-胞嘧啶甲基转移酶 NSun2 的突变则与头小畸形(microcephaly)及其他神经异常有关:在 NSun2 缺失突变体的大脑皮层、海马与纹状体神经元中,tRNA 胞嘧啶 5 位甲基化消失,ANG 更容易结合并切开 tRNA,5′-halves 因而堆积,后果是蛋白翻译速率下降、应激通路被激活、细胞体积缩小并走向凋亡 [19]。
病理应激损伤。缺氧、营养匮乏、氧化与代谢失衡都会让细胞受损,进而催生疾病;这些条件同时也是 tRNA halves 的"开关"。毒性损伤、辐射、缺血再灌注都会造成组织损伤,而在这类动物模型中,tRNA halves 的生成量随损伤程度同步变化——应激先让 tRNA 构象发生改变,随后 ANG 介导的切割被启动 [1]。5′-halves 上调还与病毒及立克次体感染密切相关,推测其作用偏向抑制凋亡、帮助细胞存活。非恶性肝脏中,tRF&tiRNA(以 30–35 nt 的 5′ halves 为主)的表达量本就较高,慢性病毒性肝炎中这一水平会迅速抬升 [18]。
生物标志物潜力
tRF&tiRNA 的种类与数量高度受细胞类型和疾病状态支配 [20]。它们在生物体液中的富集程度尤为突出,有时甚至超过 miRNA [13, 21, 22]。目前体液生物标志物的筛选大多围绕 miRNA 展开,而 tRF&tiRNA 具备几项有利条件:在多种体液中丰度高且稳定、广泛介入病理过程、在实体瘤与血液恶性肿瘤中差异表达、在癌症病人与正常对照之间分辨力强。这些条件让低侵入性的 tRF&tiRNA 生物标志物变得可行。举例来说,PLS-DA 分析显示 tRF&tiRNA 表达谱能把三阴性/三阳性乳腺癌与正常对照清楚分开 [20](图7B、7C);另有研究指出,不同 tRF&tiRNA 之间的比例关系可以作为很有效的癌症无进展生存期(PFS)指标与诊断标志物候选 [13]。
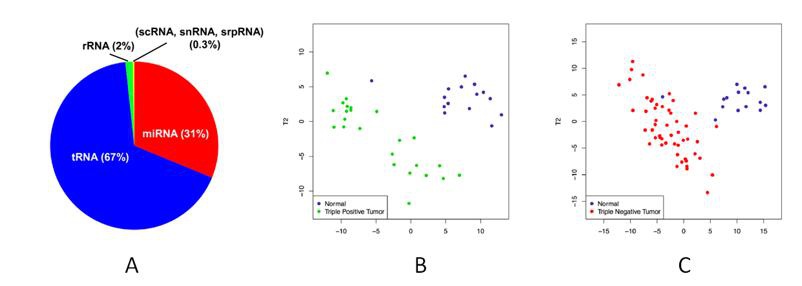
图7. (A)血浆中存在丰富的tRNA衍生片段RNA21。在PLS-DA判别分析中tRFs&tiRNAs表达谱能够清晰的分辨三阳性乳腺癌 (B)以及三阴性乳腺癌 (C)与健康对照。
如何研究 tRF&tiRNA
数谱生物提供的 tRF&tiRNA 高通量筛选技术服务,包括 nrStar™ Human tRF&tiRNAs PCR 芯片与 tRF&tiRNA-seq。拿到目标分子之后,可以沿三条路继续:用大样本验证与临床分析判断它能否成为生物标志物;用 GOF 与 LOF 实验摸清它的功能;考察它与 mRNA 或相关蛋白的相互作用,寻找可能的调控机制。
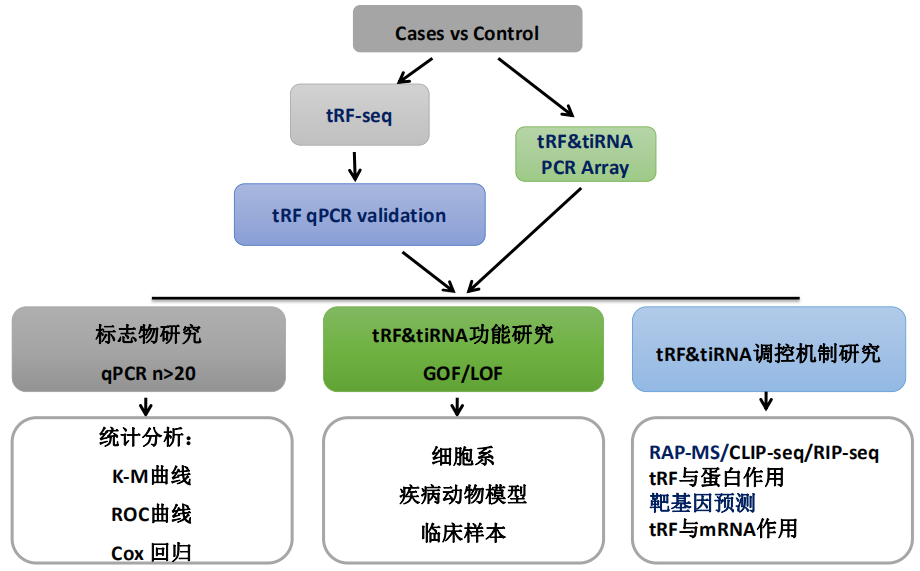
图8. tRF&tiRNA下一步研究技术路线
参考文献
- [1] Anderson, P. & Ivanov, P. tRNA fragments in human health and disease. FEBS letters 588, 4297-4304 (2014). PMID: 25220675
- [2] Pliatsika, V., Loher, P., Telonis, A. G. & Rigoutsos, I. MINTbase: a framework for the interactive exploration of mitochondrial and nuclear tRNA fragments. Bioinformatics (2016). PMID: 27153631
- [3] Zheng, L. L. et al. tRF2Cancer: A web server to detect tRNA-derived small RNA fragments (tRFs) and their expression in multiple cancers. Nucleic acids research (2016). PMID: 27179031
- [4] Gebetsberger, J., Zywicki, M., Kunzi, A. & Polacek, N. tRNA-derived fragments target the ribosome and function as regulatory non-coding RNA in Haloferax volcanii. Archaea 2012, 260909 (2012). PMID: 23326205
- [5] Sobala, A. & Hutvagner, G. Small RNAs derived from the 5' end of tRNA can inhibit protein translation in human cells. RNA Biol 10, 553-563 (2013). PMID: 23563448
- [6] Saikia, M. et al. Angiogenin-cleaved tRNA halves interact with cytochrome c, protecting cells from apoptosis during osmotic stress. Molecular and cellular biology 34, 2450-2463 (2014). PMID: 24752898
- [7] Hanada, T. et al. CLP1 links tRNA metabolism to progressive motor-neuron loss. Nature 495, 474-480 (2013). PMID: 23474986
- [8] Chen, Q. et al. Sperm tsRNAs contribute to intergenerational inheritance of an acquired metabolic disorder. Science 351, 397-400 (2016). PMID: 26721680
- [9] Sharma, U. et al. Biogenesis and function of tRNA fragments during sperm maturation and fertilization in mammals. Science 351, 391-396 (2016). PMID: 26721685
- [10] Venkatesh, T., Suresh, P. S. & Tsutsumi, R. tRFs: miRNAs in disguise. Gene 579, 133-138 (2016). PMID: 26743126
- [11] Goodarzi, H. et al. Endogenous tRNA-Derived Fragments Suppress Breast Cancer Progression via YBX1 Displacement. Cell 161, 790-802 (2015). PMID: 25957686
- [12] Emara, M. M. et al. Angiogenin-induced tRNA-derived stress-induced RNAs promote stress-induced stress granule assembly. J Biol Chem 285, 10959-10968 (2010). PMID: 20129916
- [13] Olvedy, M. et al. A comprehensive repertoire of tRNA-derived fragments in prostate cancer. Oncotarget (2016). PMID: 27015120
- [14] Maute, R. L. et al. tRNA-derived microRNA modulates proliferation and the DNA damage response and is down-regulated in B cell lymphoma. Proceedings of the National Academy of Sciences of the United States of America 110, 1404-1409 (2013). PMID: 23297232
- [15] Lee, Y. S., Shibata, Y., Malhotra, A. & Dutta, A. A novel class of small RNAs: tRNA-derived RNA fragments (tRFs). Genes & development 23, 2639-2649 (2009). PMID: 19933153
- [16] Greenway, M. J. et al. ANG mutations segregate with familial and 'sporadic' amyotrophic lateral sclerosis. Nature genetics 38, 411-413 (2006). PMID: 16501576
- [17] van Es, M. A. et al. Angiogenin variants in Parkinson disease and amyotrophic lateral sclerosis. Annals of neurology 70, 964-973 (2011). PMID: 22190368
- [18] Selitsky, S. R. et al. Small tRNA-derived RNAs are increased and more abundant than microRNAs in chronic hepatitis B and C. Scientific reports 5, 7675 (2015). PMID: 25567797
- [19] Blanco, S. et al. Aberrant methylation of tRNAs links cellular stress to neuro-developmental disorders. The EMBO journal 33, 2020-2039 (2014). PMID: 25063673
- [20] Telonis, A. G. et al. Dissecting tRNA-derived fragment complexities using personalized transcriptomes reveals novel fragment classes and unexpected dependencies. Oncotarget 6, 24797-24822 (2015). PMID: 26325506
- [21] Dhahbi, J. M. et al. 5' tRNA halves are present as abundant complexes in serum, concentrated in blood cells, and modulated by aging and calorie restriction. BMC genomics 14, 298 (2013). PMID: 23638709
- [22] Schageman, J. et al. The complete exosome workflow solution: from isolation to characterization of RNA cargo. BioMed research international 2013, 253957 (2013). PMID: 24205503
相关服务
围绕 tRF&tiRNA 的研究通常从表达谱筛选起步:tRF&tiRNA 测序适合全谱发现与分类注释,nrStar™ tRF&tiRNA PCR 芯片适合在多组样本之间做定量比较;候选分子筛出后,用 tRF&tiRNA qPCR在更大样本中验证,原料处理环节可配合 rtStar™ tRF&tiRNA Pretreatment & First-Strand Kit。如果还想同时观察 tRNA 本身的表达变化,可以叠加 tRNA 测序与 tRNA-qPCR。