近十年的研究意外发现,tRNA 的 isoacceptors 与 isodecoders 并非被动参与翻译的元件,而是具备序列特异性的主动调控功能,能够显著影响生理过程与疾病进展。 参考文献 [1]–[14]
本文要点:近十年的研究意外发现,tRNA 的 isoacceptors 与 isodecoders 并非被动参与翻译的元件,而是具备序列特异性的主动调控功能,能够显著影响生理过程与疾病进展。
数谱生物提供 tRNA 表达谱(tRNA PCR 芯片、tRNA-seq)与 tRNA 修饰(LC-MS、修饰测序)等技术服务。
tRNA 的角色被重新认识
在经典教科书里,tRNA 的形象相当"朴素":一类丰度高、分布广的接头分子,靠反密码子与 mRNA 密码子配对,把对应的氨基酸送进核糖体。携带同一种氨基酸、反密码子不同的 tRNA 互为 isoacceptors;携带同一种氨基酸、反密码子也相同、只是序列不同的 tRNA 则互为 isodecoders。近十年的研究却把"被动参与"这一印象推翻了——isoacceptors 与 isodecoders 都能以序列特异的方式主动参与调控,直接影响生物学过程与疾病进展。再加上 tRNA 在体液中丰度高、易于检出,它同时具备临床生物标志物的潜力,这个经典分子因此重新成为研究热点。
| 经典教科书中的认知 | 最新前沿进展 |
|---|---|
| 普通的、被动参与蛋白翻译的 RNA;高丰度,广泛存在 | 细胞、组织、疾病和时序特异性表达;isoacceptors 通过摆动解码效应调控翻译;isodecoders 影响生理进程和疾病发生;tRNA 及其衍生小片段 tRF&tiRNA 可作为高丰度的体液检测生物标志物 |
表达具有细胞、组织和疾病特异性
tRNA isoacceptors 与 isodecoders 的表达谱与细胞的分化和增殖状态密切相关(图1A);在胚胎发育过程中呈现出高度的组织、细胞类型、时间和空间特异性(图1B);在脑、胸腺、血液、脾脏、肝脏、睾丸、卵巢以及乳腺癌中又能看到疾病相关的变化(图1C)。例如骨髓瘤细胞的核 tRNA 表达通常高于正常骨髓细胞。这种表达特异性与生物学功能、病理生理状态紧密对应,也是 tRNA 作为生物标志物更被看好的原因。
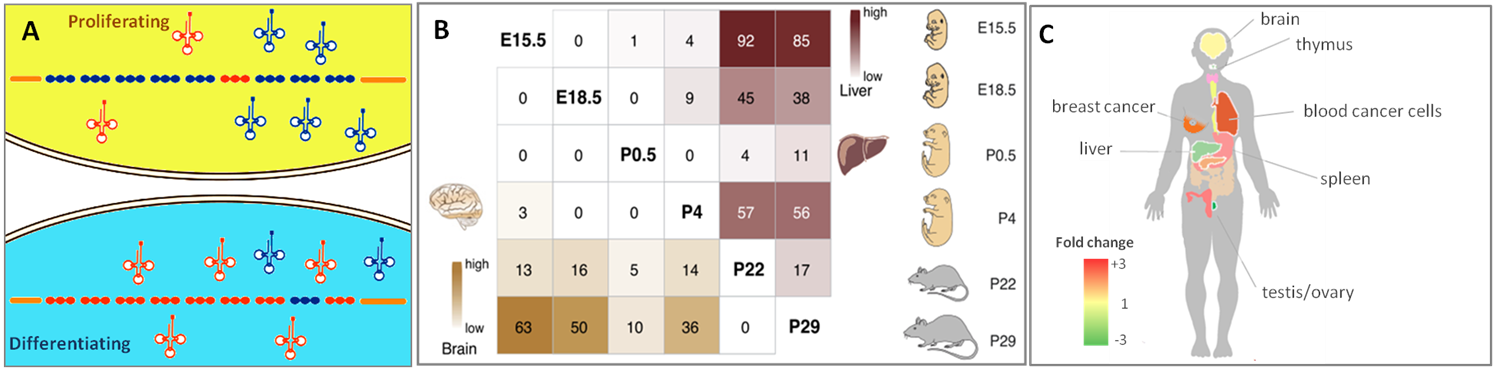
图1.(A)增殖和分化状态的细胞有不同的tRNA表达谱特征[1]。(B)tRNAs具有组织、器官、发育阶段特异性表达[2]。(C) tRNAs在不同人体组织和疾病中差异表达。例如骨髓瘤细胞相比于正常骨髓细胞通常具有更高的核tRNA表达[3]。
isoacceptors:通过摆动解码影响翻译
携带同一种氨基酸的 isoacceptor 家族共同组成细胞的 tRNA 库。借助这个库,可以研究密码子使用偏好、蛋白翻译的效率与精确性、相关生物学过程乃至其在人类疾病中的作用。密码子有两种解码方式:由完全互补配对的同工反密码子解码,或由在摆动解码位置存在单碱基错配的近似同工反密码子解码。tRNA 库中携带这两类反密码子的 tRNA 比例可以被动态调节,从而改变翻译效率、准确性与转录本稳定性(图2)。细胞在各种条件下也会调整 tRNA 库,以维持稳态或推动特定的基因表达程序。反过来说,isoacceptor 表达水平一旦紊乱,就可能带来疾病,例如肿瘤(图3A)和神经退行性疾病(图3B)。
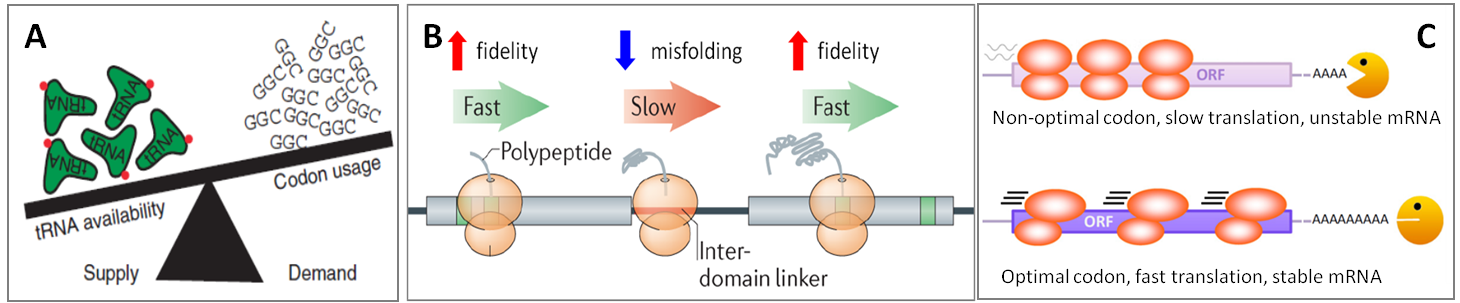
图2.(A)当同工tRNA供应量超过蛋白翻译需求量时称为最优密码子。当同工tRNA供应不足或需要使用近似同工tRNA时称为非最优密码子。(B)最优密码子加快翻译速率并提高解码精确性。非最优密码子翻译速率慢得多但有利于蛋白正确折叠,通常发生在编码的蛋白结构域之间的连接区域。(C)经过最优密码子时更快的翻译延伸速率可保护mRNA不被降解。使用非最优密码子导致翻译速率降低、核糖体停滞、暴露的mRNA更容易降解,从而缩短mRNA半衰期。
图3 给出了两个常被引用的例子。第一个是乳腺癌:过表达 tRNA-Glu-UUC 与 tRNA-Arg-CCG,会提高以它们为最优密码子的原癌蛋白 EXOSC2 和 GRIPAP1 的翻译水平,进而促进原癌基因驱动的侵袭过程(图3A)。第二个是亨廷顿舞蹈症:正常供应量的 tRNA-Gln-CUG 可以正确翻译亨廷顿蛋白中的多聚谷氨酰胺(PolyQ)重复区;当这种 tRNA 含量降低时,编码 Gln 的密码子 CAG 阅读框会前移一位,变成编码 Ala 的密码子 GCA,由此产生错误的多聚丙氨酸(PolyA)链(图3B)。亨廷顿蛋白中 Q/A 的比率决定了蛋白的聚集状态——52Q 为正常状态,20Q/12A 属中间态,17A 则是致病性聚集状态,进而影响亨廷顿舞蹈症的严重程度。
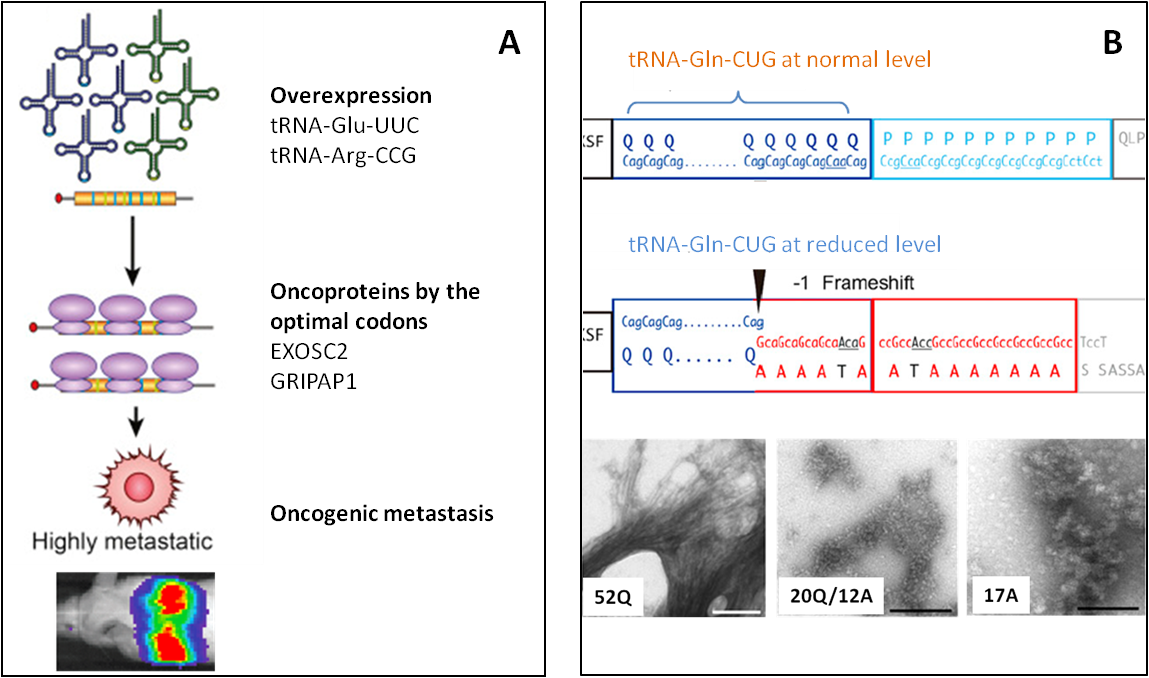
图3.(A)过表达tRNA-Glu-UUC和tRNA-Arg-CCG可上调以它们为最优密码子的原癌蛋白EXOSC2和GRIPAP1的翻译,促进原癌基因驱动的乳腺癌侵袭过程[6]。(B) 正常供应量的tRNA-Gln-CUG可以正确翻译亨廷顿蛋白中的多聚谷氨酰胺链PolyQ重复区域,tRNA-Gln-CUG含量降低则会导致移码翻译(编码Gln的密码子CAG阅读框前移一位变为编码Ala的密码子GCA)产生错误的多聚丙氨酸链PolyA。亨廷顿蛋白中Q/A的比率决定了蛋白聚集状态(52Q正常状态,20Q/12A中间态,17A致病聚集状态)从而影响亨廷顿舞蹈症的严重程度[7]。
isodecoders:序列细微差异带来功能分工
isodecoders 的序列高度保守,表达却可以完全不同,承担的功能也差异明显。小鼠的 5 种 tRNA-Arg-UCU isodecoders 中,只有一种特异性地在中枢神经系统(CNS)表达(图4A)。把它去掉之后,mRNA 上出现核糖体停滞,ATF4 驱动的压力应激反应被激活,并造成广泛的神经变性(图4B、4C、4D)。可见 CNS 特异性表达的 isodecoder 具备维持神经元稳态、防止神经变性的新功能。
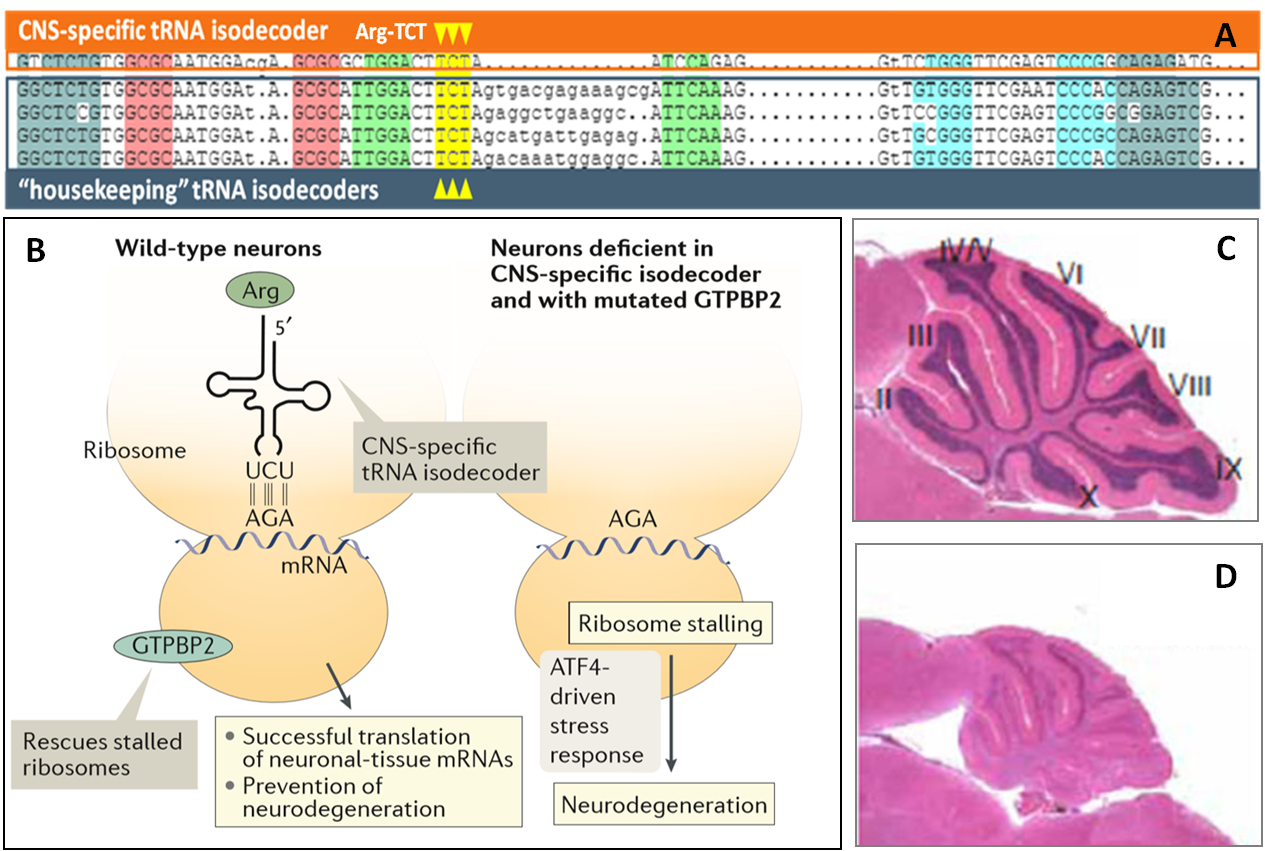
图4. (A) CNS特异性表达以及“管家”tRNA-Arg-UCU isodecoder基因序列 (B) CNS特异性表达的isodecoder对于正常神经元的翻译顺利进行至关重要,否则,该细胞将遭受神经变性。(C) 正常野生型脑。 (D) 缺失CNS特异性tRNA-Arg-UCU isodecoder 的神经变性脑 [8].
不依赖蛋白翻译的调控功能
tRNA 也能以不直接参与蛋白翻译的方式调控细胞功能。凋亡是一个典型场景:tRNA 可以结合并抑制细胞色素 C 在凋亡过程中形成凋亡复合体(图5),从而充当凋亡抑制因子。
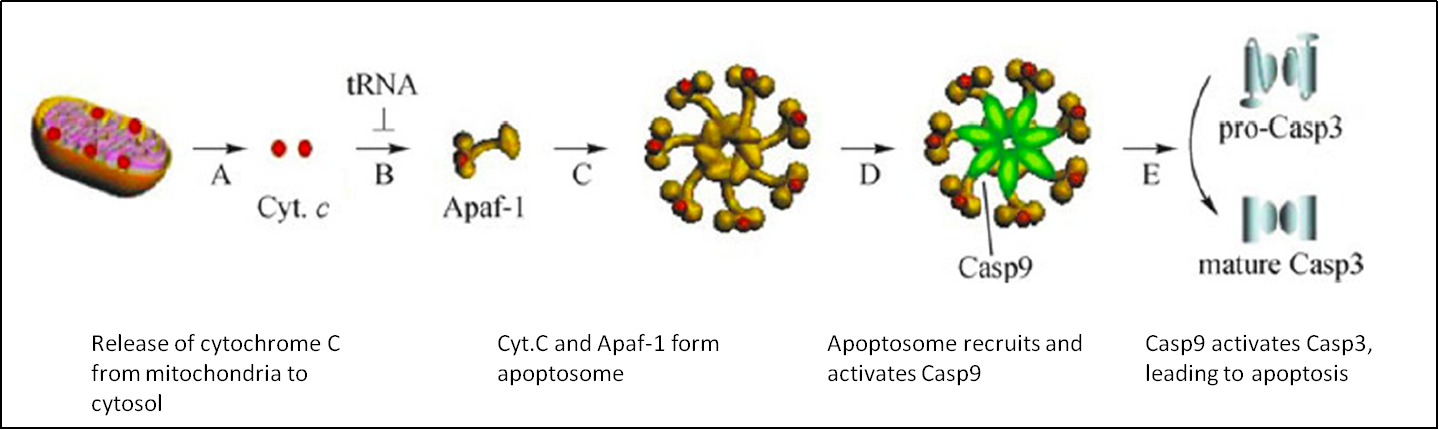
图5. tRNA结合细胞色素C,抑制凋亡复合体形成,进而抑制细胞凋亡[9,10]。
在热休克、缺氧或营养剥夺等多种细胞压力下,tRNA 往往还是最早作出应答的分子之一,并通过多种机制把整体蛋白翻译关闭(图6):营养缺乏时 tRNA 从胞质被重新运回胞核,胞质中参与翻译的 tRNA 库随之耗竭(图6A);tRNA 的 3′CCA 臂失活(图6B);缺氧诱导 tRNA 断裂形成 tRF 与 tiRNA 片段,抑制蛋白翻译起始(图6C);营养匮乏期间 tRNA 修饰发生重编程,反过来促进氨基酸合成途径中蛋白与酶的翻译(图6D)。
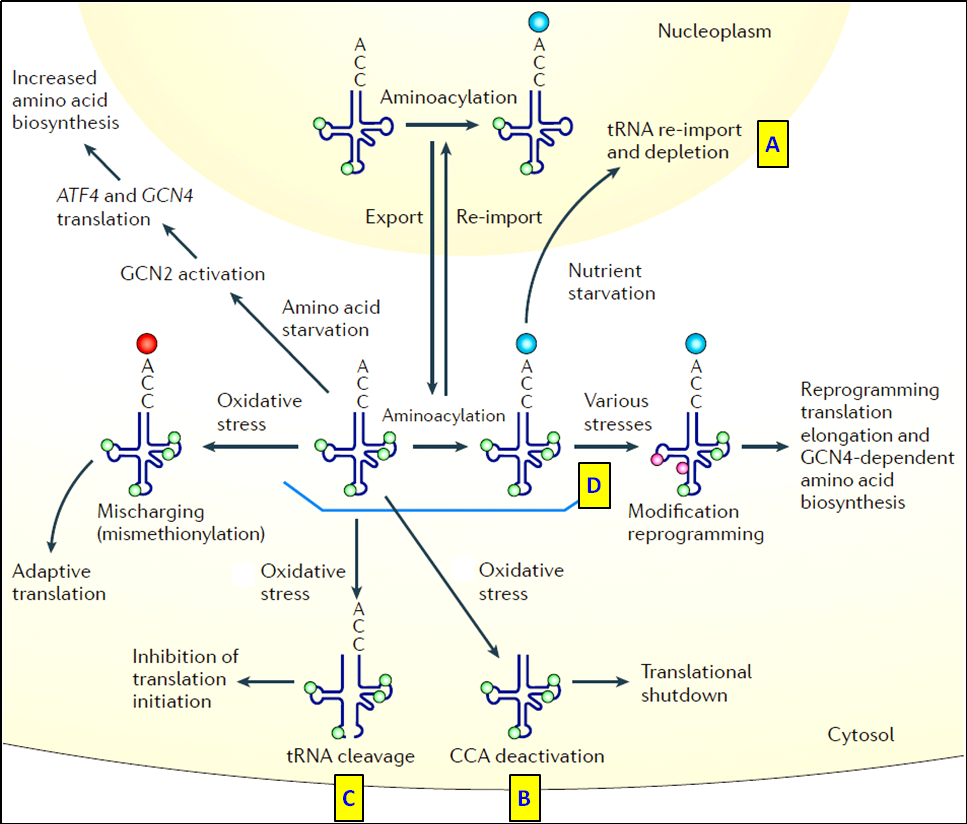
图6.响应细胞压力应激的tRNAs (A) 营养缺乏导致tRNAs从胞质重新运回胞核,使胞质中参与蛋白翻译的tRNA库耗竭; (B) tRNA 3’CCA 臂失活; (C) 缺氧诱导tRNA断裂形成tRF和tiRNA片段,抑制蛋白翻译起始。(D)在营养匮乏期间,tRNA修饰重编程促进氨基酸合成途径中蛋白质/酶的翻译[11]。
作为体液检测生物标志物的潜力
小 RNA(例如 microRNA)早已被广泛用作生物标志物,tRNA 正在成为新的一类。它们是高丰度表达的小 RNA,在某些体液样本中的含量甚至高于 miRNA(图7A)。tRNA 片段在神经元细胞外泌体中大量富集,是仅次于 rRNA 的第二丰富 RNA 种类,含量远超 miRNA(图7B)。高丰度、被大量修饰保护而带来的稳定性、以及在体液样本中富集的特点,共同意味着更好的检测灵敏度;再加上 tRNA 差异表达与疾病之间的紧密关联(图1),tRNA 有理由成为一类更具潜力的生物标志物。
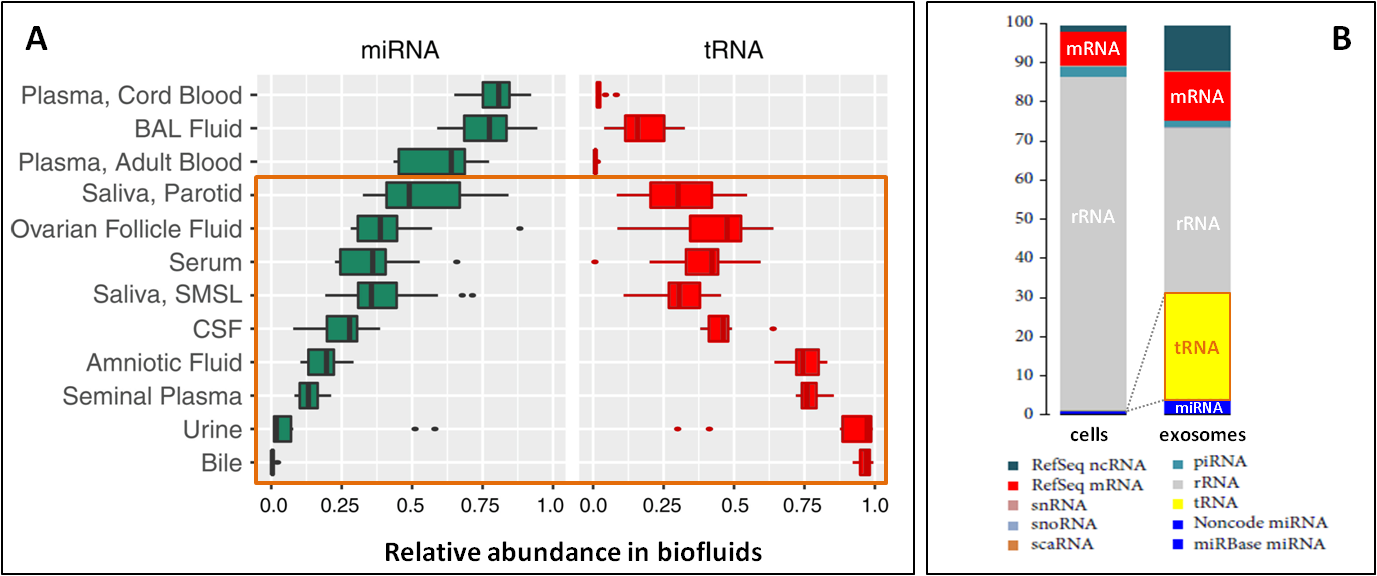
图7.(A)miRNA与tRNA在体液中相对比例的对比,在某些类型体液中tRNA含量高于miRNA [12, 13]。(B)与其他胞内RNA相比,tRNA在外泌体中高度富集,远超miRNA[14]。
参考文献
- [1] Gingold H. et al. (2014) Cell [PMID: 25215487]
- [2] Schmitt B.M. et al. (2014) Genome Res. [PMID: 25122613]
- [3] Geslain R. and G. Eriani (2014) Translation [PMID: 26779404]
- [4] Hanson G. and J. Coller (2018) Nat. Rev. Mol. Cell Biol. [PMID: 29018283]
- [5] Gavin H. et al. (2014) Molecular Cell Biology [PMID: 29018283]
- [6] Goodarzi H. et al. (2016) Cell [PMID: 27259150]
- [7] Girstmair H. et al. (2013) Cell Rep [PMID: 23352662]
- [8] Ishimura R. et al. (2014) Science [PMID: 25061210]
- [9] Mei Y. et al. (2010) Mol. Cell [PMID: 20227371]
- [10] Mei Y. et al. (2010) Protein Cell [PMID: 21113408]
- [11] Kirchner S. and Z. Ignatova (2015) Nat. Rev. Genet. [PMID: 25534324]
- [12] Godoy P.M. et al. (2018) Cell Rep [PMID: 30380423]
- [13] Schageman J. et al. (2013) Biomed Res Int [PMID: 24205503]
- [14] Quek C. et al. (2017) RNA Biol [PMID: 28005467]
相关服务
tRNA 的表达、生成与修饰可以分层来看,数谱生物在这三个层面都有对应的技术服务:nrStar™ tRNA PCR 芯片覆盖人/小鼠细胞核全部反密码子,可从 isoacceptor 与 isodecoder 两个层面分析表达水平;tRNA 测序通过去甲基化前处理解除修饰对逆转录的阻碍,用于精确定量全部 tRNA;LC-MS tRNA 修饰检测与 tRNA 修饰测序用于确认序列上的修饰类型与位点;NuRNA™ tRNA Modification Enzymes PCR 芯片则从修饰酶与辅助因子的角度切入。