筛选发现 ALKB-1 突变体的父系线粒体清除明显受阻(图1A):敲除或敲低后精子中的父系线粒体与线粒体 DNA 异常积累,重新表达 ALKB-1 可以挽救该表型,且 ALKB-1 在生殖细胞中高表达。 2026
期刊与年份:《Nature Communications》(IF: 15.7),2026 年 1 月
研究团队:暨南大学汕头临床医学院王昊团队
主要结论:研究首次把表观转录组修饰、线粒体质量控制与母系线粒体遗传三件事建立功能联系:ALKB-1 通过 tRNA m¹A 去甲基化维持翻译与线粒体稳态,"表观转录组—翻译—线粒体稳态—ROS—逆行信号"这条轴因此成为理解母系遗传的新视角。
该成果 2026 年 1 月发表在《Nature Communications》(IF: 15.7),文章所采用的 tRNA 修饰测序与 LC-MS tRNA 修饰检测均由数谱生物提供。
研究背景
线粒体 DNA 只由母亲传递给后代,受精后父源线粒体通常会被及时清除——这一机制能阻止有害的 mtDNA 突变扩散,维持线粒体基因组的稳定。tRNA 修饰是翻译的关键调控层,已被证明影响蛋白质合成与细胞命运决定,但它在生殖过程与线粒体遗传中的功能一直缺少证据。
研究设计与方法
暨南大学汕头临床医学院王昊团队与生命科学技术学院万钦黎、周庆华团队联合,以秀丽隐杆线虫为模型:先对 RNA 与 DNA 修饰相关基因的突变体做系统筛选,锁定候选因子后再通过敲除、敲低与回补确认表型;机制层面把 LC-MS tRNA 修饰检测、tRNA m¹A 修饰测序、RNC-seq 与蛋白质组学结合起来,最后用遗传学实验串起下游通路。该成果 2026 年 1 月发表在《Nature Communications》(IF: 15.7),文章所采用的 tRNA 修饰测序与 LC-MS tRNA 修饰检测均由数谱生物提供。
主要发现
一、ALKB-1 缺失导致父系线粒体清除缺陷。筛选发现 ALKB-1 突变体的父系线粒体清除明显受阻(图1A):敲除或敲低后精子中的父系线粒体与线粒体 DNA 异常积累,重新表达 ALKB-1 可以挽救该表型,且 ALKB-1 在生殖细胞中高表达。
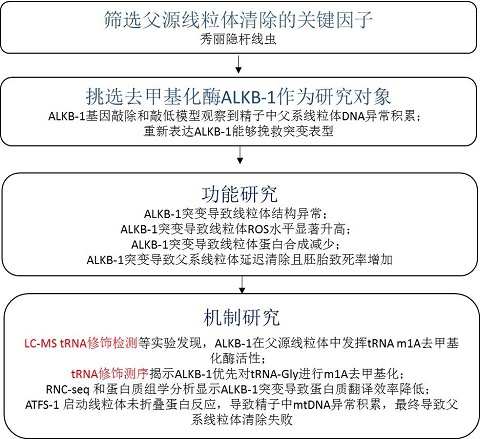
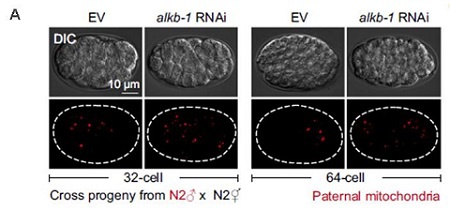
图1. A. 微分干涉对比(DIC)和 MTR 染色的父系线粒体图像显示敲低alkb-1导致父系线粒体明显增多。
二、ALKB-1 是 tRNA m¹A 的去甲基化酶。LC-MS tRNA 修饰检测流程与结果显示,ALKB-1D247A 突变体中 m¹A 总体水平显著上升、6mA 无明显变化(图2A、2B),Dot blot 得到一致结论;体外去甲基化实验表明重组野生型 ALKB-1 能降低茎环 tRNA 探针的 m¹A 水平,而 D247A 突变体没有活性。tRNA m¹A 修饰测序进一步显示,该突变体中 11 种 tRNA 同工解码子的 m¹A 升高、4 种降低;上调者包含 9 种胞质 tRNA 与 2 种线粒体 tRNA,其中 8 种属于 tRNA-Gly(TCC/GCC)同工受体,说明 ALKB-1 优先作用于 tRNA-Gly。RNC-seq 与蛋白质组学显示翻译效率与蛋白水平成批改变(471 个转录本翻译上调、140 个下调;121 个蛋白上调、47 个下调,图2C、2D),提示 m¹A 过高会改变 tRNA 构象与密码子识别,引起核糖体停滞、翻译效率下降。
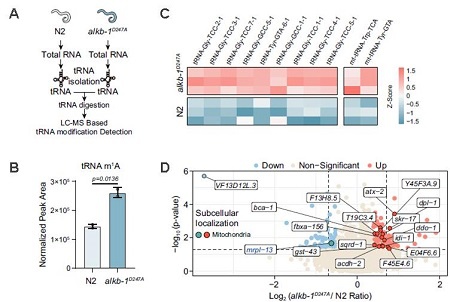
图2. A. LC-MS tRNA修饰检测流程图;B.LC-MS tRNA修饰检测结果显示,ALKB-1D247A突变体导致tRNA m1A总体水平显著上升;C. tRNA m1A修饰测序结果表明,ALKB-1D247A突变体中11种tRNA同工解码子的m1A水平显著升高;D. RNC-seq与蛋白组学分析结果显示,ALKB-1D247A突变体中线粒体蛋白明显增加。
三、线粒体功能受损并波及胚胎发育。突变体线粒体的嵴结构与网络完整性异常,膜电位与 ATP 产量下降,ROS 显著升高,线粒体编码蛋白合成减少,hsp-6、gro-1 等分子伴侣表达上升提示线粒体未折叠蛋白反应被激活。遗传实验把下游路径理清:ROS 升高激活氧化应激因子 SKN-1/Nrf2,同时经 ATFS-1 启动线粒体未折叠蛋白反应,推动线粒体生物合成与 mtDNA 扩增,最终延迟父系线粒体清除(图3A–3E)。功能后果上,突变精子的受精竞争力下降,后代数量减少、胚胎致死率上升。
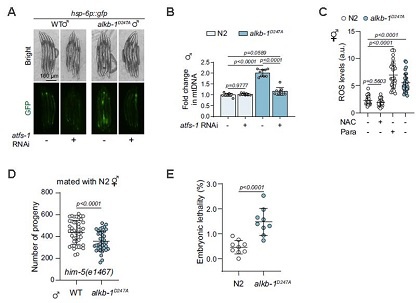
图 3. A. ALKB-1突变激活体线粒体未折叠蛋白反应通路;B. ALKB-1突变体中,ATF-1介导精子中线粒体 DNA(mtDNA)累积;C. ALKB-1突变导致线粒体ROS水平显著升高;D. ALKB-1突变导致怀孕数目显著减少;E. ALKB-1突变导致胚胎致死率增加。
这项工作的意义
研究首次把表观转录组修饰、线粒体质量控制与母系线粒体遗传三件事建立功能联系:ALKB-1 通过 tRNA m¹A 去甲基化维持翻译与线粒体稳态,"表观转录组—翻译—线粒体稳态—ROS—逆行信号"这条轴因此成为理解母系遗传的新视角。鉴于 ALKBH1 在哺乳动物中保守,这些结果对理解人类线粒体疾病、不育与胚胎发育异常也有参考意义。
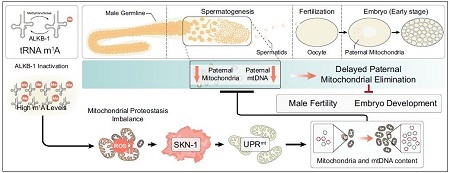
图 4. ALKB-1功能缺失会延迟秀丽隐杆线虫(C. elegans)中的父系线粒体清除(PME),这主要归因于其tRNA m¹A去甲基化酶活性。ALKB-1失活会升高tRNA m¹A水平,增强细胞质蛋白质翻译,从而增加线粒体蛋白质流入并导致功能障碍。这种破坏引发的活性氧(ROS)升高作为逆行信号的关键驱动因素,激活转录因子SKN-1和线粒体未折叠蛋白反应(UPRᵐᵗ)。该级联反应促进线粒体生物合成和线粒体DNA(mtDNA)扩增,在精子发生和早期胚胎发育过程中延迟父系线粒体的清除。