已知的作用机制至少有两类:一是改变 miRNA 的靶向性,二是改变 tsRNA(tRF&tiRNA)与 RNA 结合蛋白的亲和力。
本文要点:Small RNA 可以被不同的化学基团修饰,这些修饰一方面调节它们自身的活性,另一方面也可能赋予全新的功能。
小 RNA 上的修饰怎么产生作用
Small RNA 可以被不同的化学基团修饰,这些修饰一方面调节它们自身的活性,另一方面也可能赋予全新的功能。已知的作用机制至少有两类:一是改变 miRNA 的靶向性,二是改变 tsRNA(tRF&tiRNA)与 RNA 结合蛋白的亲和力。正因为如此,Small RNA 修饰谱分析成为表观转录组学的一个新前沿。
机制一:种子区修饰让 miRNA 靶向"改道"
miRNA 种子区(第 2–8 位碱基)被修饰后,它抑制的靶基因会发生重定向。一个典型例子是 O⁸G 修饰的 miR-184:修饰后它转而特异性地靶向原本序列并不匹配的 Bcl-xL 与 Bcl-w,抑制这两个抗凋亡蛋白的翻译,使心脏对心肌缺血/再灌注损伤更敏感(图1)。另一个案例是 miR-1——肾上腺素能激动剂处理使 O⁸G 修饰增多后,miR-1 转向一群参与心肌肥大通路的新靶点。事实上在病理条件下,对 miRNA 的 O⁸G 修饰是一种普遍存在的表观转录机制,属于 ROS 微调基因表达的氧化还原信号通路的一部分。
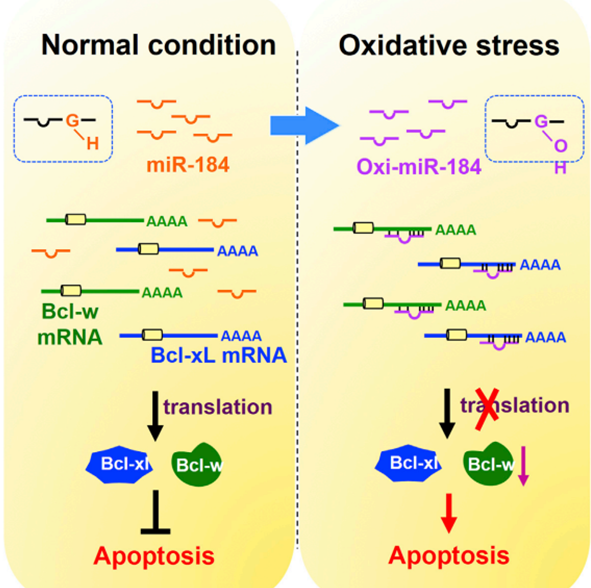
图1、 O8G修饰的miR-184重定向到不匹配的Bcl-xL和Bcl-w mRNA从而发挥靶向功能,抑制相应抗凋亡蛋白的翻译,从而导致心脏对心肌缺血/再灌注(I/R)损伤的敏感性增强。
机制二:带修饰的小 RNA 作为"诱饵"结合 RNA 结合蛋白
修饰后的 small RNA 可以诱捕 RNA 结合蛋白(RBP),阻止 RBP 与靶 mRNA 结合,从而以修饰依赖的方式调控基因表达。例如 5′ 端寡聚鸟嘌呤 tsRNA(TOG-tsRNA)在第 8 位可以是未修饰的尿苷(U8),也可以是被 PUS7 修饰的假尿苷(Ψ8);这个位点的状态决定了它与翻译起始因子聚腺苷酸结合蛋白 1(PABPC1)的亲和力——Ψ8 型结合更紧,能把 PABPC1 从 mRNA 上"抢"下来,进而抑制带帽 mRNA 的翻译,而 U8 型没有这个能力(图2)。
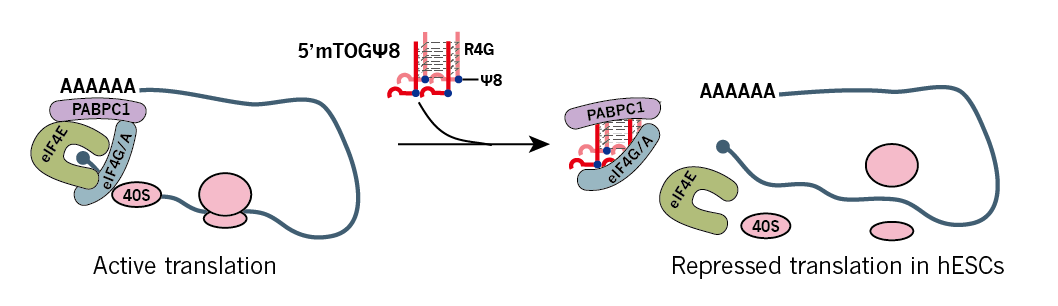
图2、 8号位碱基带有Ψ修饰的5'TOG-tsRNAs诱捕并使PABPC1从翻译起始复合物中脱离,从而抑制带帽mRNA的翻译[4]。
参考文献
- [1] Wang JX, et al. Oxidative modification of miR-184 enables it to target Bcl-xL and Bcl-w. Molecular Cell 2015;59(1):50-61. PMID: 26028536
- [2] Seok H, et al. Position-specific oxidation of miR-1 encodes cardiac hypertrophy. Nature 2020;584(7820):279-285. PMID: 32760005
- [3] Seok H, et al. MicroRNA target recognition: insights from transcriptome-wide non-canonical interactions. Molecules and Cells 2016;39(5):375-381. PMID: 27117456
- [4] Guzzi N, et al. Pseudouridylation of tRNA-derived fragments steers translational control in stem cells. Cell 2018;173(5):1204-1216.e26. PMID: 29628141
相关服务
研究这类机制需要先看清小 RNA 上的修饰分布:Small RNA 修饰芯片可在 tRNA、tRF&tiRNA、miRNA、pre-miRNA 等多种小 RNA 上检测选定的单一修饰(m⁵C / m⁷G / m¹A / Ψ / m⁶A / o⁸G 可选),适合与 miRNA 靶点分析、RBP 互作实验配套使用。