microRNA 通过和靶基因 mRNA 碱基配对引导沉默复合体(RISC)降解 mRNA 或抑制 mRNA 的翻译,从而在转录后水平调控蛋白表达(最新发现 microRNA 也能在转录水平调控基因表达)。 2007 年 8 月
期刊与年份:2007 年 8 月
主要结论:miRNA 在细胞分化、生物发育以及疾病的发生发展中作用显著,围绕它的研究也在不断深入。
数谱生物提供 tRF&tiRNA 测序、qPCR 与 PCR 芯片,以及 tRNA 测序与修饰检测服务。
microRNA 的基本特征
miRNA 是由基因组转录而来的一类小非编码 RNA,长度约 20–22 bp。它的工作方式是碱基配对:与靶基因的 mRNA 配对之后,引导沉默复合体(RISC)把 mRNA 降解掉,或者抑制它的翻译,结果是蛋白表达在转录后被调低;更新的研究显示,miRNA 还能在转录水平上发挥作用。这类分子在物种进化中很保守,无论动物、植物还是真菌,miRNA 的表达都带有严格的组织特异性与时序性。细胞生长和发育中的多项事件——发育、分化、凋亡、增殖——都有 miRNA 参与。据 Sanger 研究所 2007 年 8 月公布的数据库资料,当时已知的人 miRNA 已超过 700 个,是最初推算数目的 3 倍多,此外还有大量预测的 miRNA 基因等着实验验证。miRNA 功能的普遍性与重要性,也是最近十几年才被广泛认识。对 tRNA 与 tRF&tiRNA 研究来说,miRNA 是最早被系统拆解的一类小 RNA,它在表达失调、加工机器与临床转化上的经验可以直接借鉴。
生成路径与作用方式
miRNA 的成熟要经过一套复杂的蛋白系统,参与者包括 Argonaute 家族成员、Pol II,以及 RNA 酶 III 家族中的 Drosha 与 Dicer。转录发生在核内,由 RNA 聚合酶 II(pol II)完成,最初产物 pri-miRNA 带有帽子结构(7MGpppG)和多聚腺苷酸尾巴(AAAAA)。随后核酸酶 Drosha 与其辅助因子 Pasha 把它加工成约 70 个核苷酸的 pre-miRNA;后者经 RAN–GTP 与 exportin 5 复合物运出核,在细胞质里被核酸酶 Dicer 剪成 22 个核苷酸的 miRNA:miRNA* 双链,很快进入沉默复合体(RISC),其中成熟 miRNA 被留下,通过与靶 mRNA 结合来调控基因表达。作用结果取决于配对程度:哺乳动物中更常见的是不完全互补,miRNA 结合在 mRNA 的 3′ 端非翻译区,抑制蛋白质翻译;植物中更常见的是完全互补或几乎完全互补(位点通常落在 mRNA 编码区),此时靶 mRNA 被降解。调控并不是一对一——一个 miRNA 可以管多个靶基因,几个 miRNA 也可以共同作用于同一个靶基因,由此搭起一张精细的调控网络(图1)。
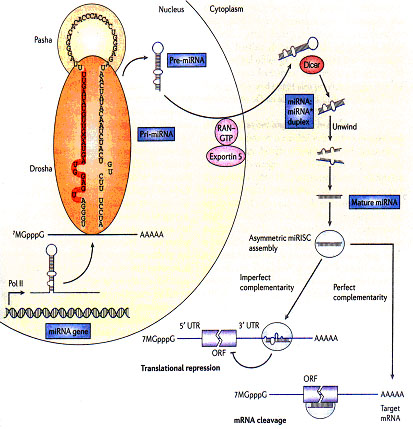
图1. microRNA的生物合成
生理功能:从发育到代谢
迄今被阐明功能的 miRNA 只是很小一部分,而已知的功能集中在调节细胞生长与组织分化上,与生物体的生长发育有关。多项研究显示,miRNA 在细胞生长与凋亡、血细胞分化、同源异形盒基因调节、神经元极性、胰岛素分泌、大脑形态形成、心脏发生以及胚胎后期发育中都发挥作用。可以列出不少具体例子:线虫神经系统发育需要 miR-273;斑马鱼大脑发育需要 miR-430;哺乳动物造血细胞向 B 细胞分化由 miR-181 控制;胰岛细胞发育与胰岛素分泌受 miR-375 调节;脂肪细胞分化涉及 miR-143;哺乳动物四肢形成与 miR-196 有关;心脏发育与 miR-1 相关。还有研究发现,神经系统中许多 miRNA 在大脑皮层培养时受到时序调节,推测它们可能负责区域化的 mRNA 翻译。对这些新功能的追踪提示,miRNA 可能是器官形成、胚胎发育与生长的调节因子,同时也有助于理解癌症等人类疾病的发病机制。
与肿瘤的关联
miRNA 表达水平改变最早是在 B 细胞慢性淋巴性白血病(CLL)中观察到的,此后各种人类肿瘤里都陆续检测到类似的表达变化。这些分子与肿瘤形成有关,而且方向并不统一:有的行使肿瘤抑制基因的功能,例如 miR-15a 与 miR-16-1;有的则像癌基因一样起作用,例如 miR-155 与 miR-17-92 簇。癌症相关的 miRNA 因此又被称为"oncomirs"。目前的认识是,肿瘤细胞中 miRNA 的成熟体或前体表达水平出现异常,异常表达的 miRNA 再通过影响靶 mRNA 的翻译参与并推动肿瘤形成。具体对应关系包括:Ras 原癌基因受 let-7 家族调控,BCL2 抗凋亡基因受 miR-15a-miR-16-1 簇调控,E2F1 转录因子受 miR-17-92 簇调控,BCL6 抗凋亡基因受 miR-127 调控。
表达失调从哪里来
关于 miRNA 表达为何会异常,目前至少找到 3 种机制,它们可能各自单独起作用,也可能彼此协同。
来源一:miRNA 恰好落在肿瘤相关基因组区域(CAGRs)。半数以上的 miRNA 位于那些已被证实在肿瘤中会发生改变的染色体区域。这些区域大致有四种:最小杂合子缺失区域(minimal regions of LOH),通常抑癌基因就落在其中;最小扩增区域,里面可能藏着癌基因;常见断裂位点,位置往往靠近癌基因或抑癌基因;以及脆性位点(FRA, fragile sites)。脆性位点本身容易发生姐妹染色质交换、易位、缺失与扩增,也是质粒 DNA 和肿瘤相关病毒(如人乳头瘤病毒 HPV)插入的地方。研究显示 miRNA 位点与致癌性 HPV 的插入位置显著相关,而这类 HPV 与子宫内膜癌有关,因此可以推测:人类基因组里若有病毒插入,也可能干扰 miRNA 的功能。用高分辨芯片兼容的基因组杂交(aCGH)方法扫描肿瘤基因组后发现,miRNA 位点发生变化的频率很高,约 75% 的成熟 miRNA 与 DNA 拷贝数之间存在相关性。这一结论与乳腺癌中独立得到的表达谱数据吻合——在那里,miRNA 扩增与过表达的一致率达到 81%,miRNA 缺失与表达下调的一致率为 60%(图2)。
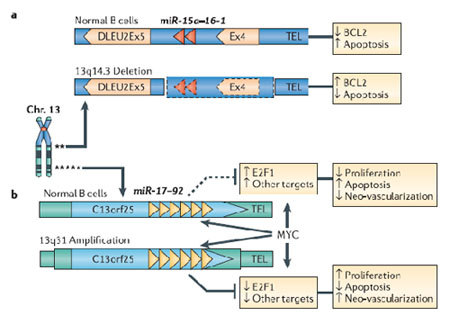
图2. 染色体水平上microRNA位点的改变
染色体层面最典型的两种改变——杂合子缺失与扩增——分别出现在 13 号染色体的两个独立区域:
a. 13q14.3 是 miR-15a-miR-16-1 簇的所在地。发生缺失的 B 细胞慢性淋巴细胞白血病中,这两个 miRNA 表达下调,随之而来的是抑制凋亡的 BCL2 蛋白水平升高。
b. 13q31 是 miR-17-92 簇的所在地。发生扩增的淋巴瘤中,同一簇来源的 miR-17-5p 与 miR-20a 都表达上调,转录因子 E2F1 因此被下调。E2F1 能促进细胞增殖,不过表达量越过一定阈值后它也能引发凋亡;miRNA 对 E2F1 的负调控有可能正好挡掉这条凋亡路径,让 MYC 介导的细胞增殖得以进行。
来源二:表观遗传层面的调控。细胞恶性转化的表观遗传标志包括 DNA 整体甲基化水平偏低、CpG 岛过甲基化以及组蛋白修饰失调,而表观遗传改变同样会作用到 miRNA 的表达上。乳腺癌细胞中,抑制组蛋白去乙酰化酶的活性会让 miRNA 水平出现广泛而迅速的变化。在膀胱癌细胞上把 5-氮杂脱氧胞苷(5-AzaCdR)与组蛋白去乙酰化酶(HDAC)抑制物 4-苯丁酸(PBA)联合使用,同时检测的 313 个 miRNA 里有 17 个表达上调 3 倍以上,其中 miR-127 的变化幅度最大。miR-127 位于染色体 14q32 的一个 CpG 小岛内,而这块区域在造血系统肿瘤中常发生易位、在实体瘤中会发生杂合子缺失(LOH)。联合用药还使 miR-127 基因转录起始位点附近的 DNA 甲基化水平下降、活性组蛋白标记增加。已知 miR-127 会抑制 BCL6 的翻译,因此可以推测:5-AzaCdR 与 PBA 联合处理后诱导出的 miR-127,能够压低 BCL6 这类抗细胞凋亡因子的水平,把细胞推向凋亡,从而产生抗癌效果。这一效应并不普遍——对非小细胞肺癌(NSCLC)细胞做去甲基化处理或同时加 HDAC 抑制剂,miRNA 表达水平没有明显变化;正常肺细胞中本来也检测不到 miR-127,肺癌组织与正常肺组织之间同样没有表达差异。由此看来,DNA 去甲基化与组蛋白去乙酰化对 miRNA 表达的影响可能因组织而异。
来源三:miRNA 加工环节的基因与蛋白出了变化。miRNA 生物合成涉及的蛋白机制相当复杂,其中任何一个环节的蛋白发生改变,都会对 miRNA 表达造成剧烈影响。一项针对 NSCLC 病人开展的大规模研究发现,部分肺癌患者的 Dicer 蛋白下调,而 Drosha 蛋白水平没有变化;这种状态与患者手术后存活率下降、肿瘤低分化有关。NSCLC 患者的存活率还与 miR-155 和 let-7 的表达水平存在相关性。换句话说,患者生存情况是异常加工与异常表达共同作用的结果。小 RNA 加工相关蛋白发生遗传异常时,影响往往远超预期:近年发现了一类种系特异的小 ncRNA,长度 26–31 个核苷酸,被命名为 PIWI 相互作用 RNA(piRNA),它们与睾丸特异性的鼠 PIWI 蛋白直系同源物结合。更值得留意的是人类这一 Argonaute 蛋白亚类的同源蛋白 HIWI——它在染色体上定位于 12q24.33,而这个区域与青少年及成年人睾丸生殖细胞癌的发展密切相关;HIWI 在大多数睾丸精原细胞瘤中都过表达,在胃癌中它的表达与增殖中的细胞相关。这些线索提示,piRNA 可能代表肿瘤里发生改变的小 ncRNA 的另一类,其背后是与 PIWI 过表达相关的机制。
走向临床的三条路径
诊断。临床上有一类棘手病例叫 CUP,即原发瘤位置未知的转移瘤:肿瘤已经转移(属于癌症晚期),却找不到最初发生的位置和转移起点。这类肿瘤分化差、缺乏明显的组织学诊断特征,而基于 miRNA 的分类方法在这方面比基于 mRNA 的方法更准确。原因之一是所需指标数量差别很大——分析几百种 miRNA 就能有效完成 CUP 诊断,而 mRNA 方案要处理成千上万条转录本。另一种常见的成人白血病 CLL 也借助 miRNA 表达谱找到了可作为特异性标记物的分子,可以按预测的预后好坏、或者疾病是否会恶化对病人分组。此前能用的预后标记物极少,只有 70 kDa 的 zeta 链相关蛋白(ZAP70)和免疫球蛋白重链可变区基因(IgVH)等。举例来说,预后好的 CLL 病人 miR-16-1 与 miR-15a 表达水平偏低,这与更早发现的"预后好的 CLL 病人存在基因组 13q14.3 位点缺失"相符,而缺失片段恰包含 miR-16-1 与 miR-15a;预后差的病人则表现出 miR-29 家族下调。近期还发现,恶性期病人 CLL 细胞中过表达的癌基因 TCL1 正是 miR-29 的靶基因之一。据此可以推测 CLL 存在两种分子类型、临床特征相反:一类是 13q14.3 缺失、miR-16-1 与 miR-15a 低表达,病人预后良好、进展缓慢;另一类是 miR-29 低表达、TCL1 蛋白高表达,疾病会推进到恶性期并出现 Richter 综合征。
预后。肺癌是全球男性癌症患者中死亡率最高的,而新的预后标志物——即与疾病进展相关的标记——能够改善诊断效果。对美国肺癌患者的单变量分析显示,miR-155 高表达与 let-7a-2 低表达都与病人存活率差相关;多变量分析进一步表明,即使纳入全部临床变量,miR-155 的表达水平依然与预后差相关。另一项针对 143 位日本肺癌病人的独立研究发现,let-7 表达水平下降与外科治疗后生存时间缩短显著相关;在多变量分析中,let-7 低表达可以作为独立的预后标志用于疾病分期,且与生存期缩短显著相关。把 29 项关于 Ras 癌基因在 NSCLC 病人存活中作用的研究汇总做荟萃分析,结果显示 Ras 过表达与生存期缩短有关;由于 let-7 对 Ras 起负调控作用,这一结果也从侧面支持了 let-7、Ras 表达与肺癌预后之间的相关性。
治疗。miRNA 是天然的反义作用因子,能够调控与真核生物生存、增殖相关的多种基因,因而在肿瘤治疗上有可观的前景。把 miRNA 作为治疗靶点已有实验支持:用吉西他滨(gemcitabine)治疗的过程中会出现 miRNA 表达谱的改变;改变部分 miRNA 的水平(例如让 miR-21 过表达)可以增强胆管癌细胞对化疗药物的敏感性。要让这类分子真正进入体内应用,还需要更长的半衰期与更持久的功效,经过改造的分子——如 LNA 修饰的寡核苷酸、抗 microRNA 寡核苷酸(AMOs)和反义 microRNA(antagomirs)——是基础研究向临床治疗转化的起点。往后还需要在体内开展 miRNA 转基因与敲除试验,为 miRNA 治疗的安全性和有效性提供依据。
小结
miRNA 在细胞分化、生物发育以及疾病的发生发展中作用显著,围绕它的研究也在不断深入。随着作用机理逐步清楚,加上 microRNA 芯片等通量技术用于观察 miRNA 与疾病的关系,人们对高等真核生物基因表达调控网络的认识将被推到新的高度。miRNA 既是疾病诊断中的新型生物学标记,也可能进一步成为分子药靶,或通过模拟其作用机制参与新药研发,为肿瘤等人类疾病提供新的治疗思路和手段。
相关服务
从 miRNA 到 tRNA、tRF&tiRNA,小 RNA 方向的研究思路相通:先在表达层面做筛选与定量,再结合功能实验与机制验证。数谱生物的小 RNA 服务覆盖 tRF&tiRNA 测序、tRF&tiRNA qPCR、nrStar™ tRF&tiRNA PCR 芯片以及 tRNA 测序等,可用于小 RNA 的表达定量、差异筛选与后续验证;如果研究关注序列上的化学修饰,还可以结合 LC-MS tRNA 修饰检测与 tRNA 修饰测序做进一步确认。