沉默 SNORD88C 后的 TMT 蛋白组学把差异基因指向不饱和脂肪酸合成等代谢通路(图3A);GC-MS 代谢组学显示油酸等单不饱和脂肪酸(MUFA)在敲低后显著下降(图3B);C11 bodipy 探针证实沉默促进脂质过氧化(图3C)。 2022
期刊与年份:《Cell Death & Differentiation》(IF: 12.067),2022 年
研究团队:山东省第一医科大学宋现让教授课题组
主要结论:这条链路为 snoRNA 调控 NSCLC 提供了新的机制解释。
成果 2022 年发表在《Cell Death & Differentiation》(IF: 12.067),研究中的 snoRNA 测序由数谱生物提供技术服务。
研究背景
非小细胞肺癌(NSCLC)占肺癌的约 85%,恶性程度高:即使治疗手段不断更新,确诊后 5 年存活率仍只有 16%,且约三分之二的患者会出现转移。这既需要更清楚地理解病程机制,也需要可用的诊断标志物与治疗靶点。snoRNA 是长度 60–300 nt 的非编码小 RNA,按结构分为两类:H/ACA box(SNORA)与 dyskerin 组成复合物,负责 rRNA 的假尿嘧啶修饰;C/D box(SNORD)与 FBL 组成复合物,介导 rRNA 的 2′-O-甲基化。这类 rRNA 修饰会影响核糖体生成、活性与翻译保真度,因此与肿瘤发生发展相关。
研究设计与方法
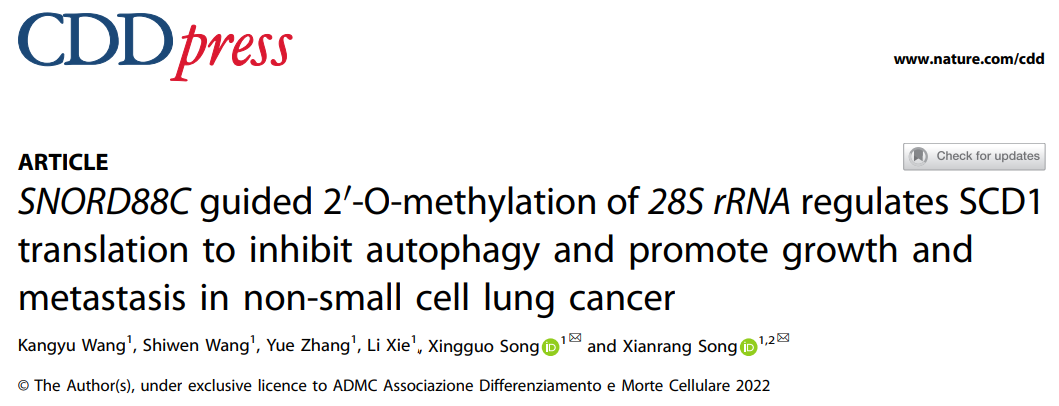
山东省第一医科大学宋现让教授课题组先在 TCGA SNORic 数据库中比较肺腺癌、肺鳞癌与癌旁的 snoRNA 差异,同时用 snoRNA 测序检测健康人与 NSCLC 患者血浆(4 vs 6)的差异表达,两者取交集;随后在扩大样本的组织、FFPE 与血浆中验证并做 ROC 分析;机制层面把 TMT 蛋白组学、GC-MS 代谢组学、脂质过氧化探针、LC3B 与免疫印迹、snoPY 靶点预测、RTL-P 与 Polysome profiling 组合使用。成果 2022 年发表在《Cell Death & Differentiation》(IF: 12.067),研究中的 snoRNA 测序由数谱生物提供技术服务。
主要发现
一、SNORD88C 在组织与血浆中同步升高。snoRNA 测序显示 SNORD88C 在患者血浆中上调(图1A);与 TCGA 数据库中 LUAD、LUSC 的差异 snoRNA 取交集后,SNORD88C 是两者共同上调的分子(图1B);扩大样本后在 TCGA 组织与 FFPE 样本中验证其在 NSCLC 及早期阶段均升高(图1C)。ROC 分析显示,SNORD88C 单独用于 NSCLC 诊断的 AUC 为 0.7097,早期 NSCLC 中与癌胚抗原 CEA 联用的 AUC 为 0.7279(图1D),说明它具备非侵入性诊断标志物的潜力。
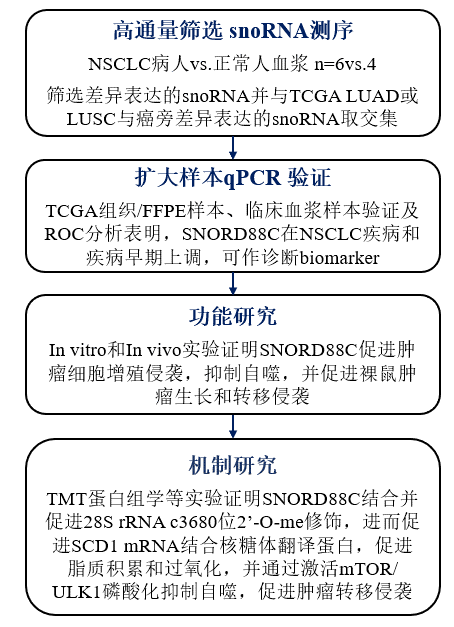
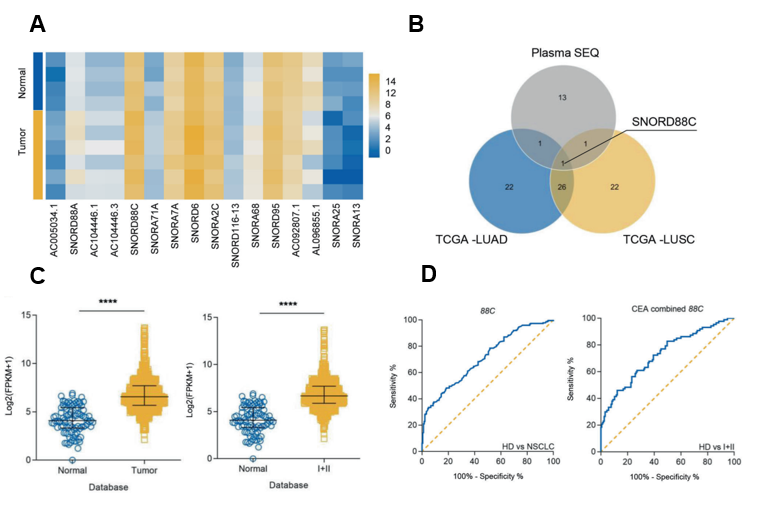
图1:NSCLC癌和癌旁组织\癌与正常血浆中的SNORD88C表达上调。
二、SNORD88C 促进肿瘤生长与转移。体外实验中,过表达 SNORD88C 增强、敲低则抑制 NSCLC 细胞的克隆形成、增殖、迁移与侵袭(图2A、2B);小鼠移植瘤实验中敲低 SNORD88C 使肿瘤体积与重量下降、凋亡增加,并抑制转移(图2C、2D)。
图2:功能研究证实SNORD88C的表达促进NSCLC肿瘤发生发展。
三、通过脂质代谢与自噬影响肿瘤行为。沉默 SNORD88C 后的 TMT 蛋白组学把差异基因指向不饱和脂肪酸合成等代谢通路(图3A);GC-MS 代谢组学显示油酸等单不饱和脂肪酸(MUFA)在敲低后显著下降(图3B);C11 bodipy 探针证实沉默促进脂质过氧化(图3C)。由于代谢会调控自噬,研究进一步发现 SNORD88C 促进 mTOR/ULK1 磷酸化、抑制自噬体形成;而回补 MUFA 合成酶 SCD1 可以重新激活被沉默抑制的自噬与 mTOR 通路,并恢复肿瘤的转移侵袭能力(图3D、3E)。
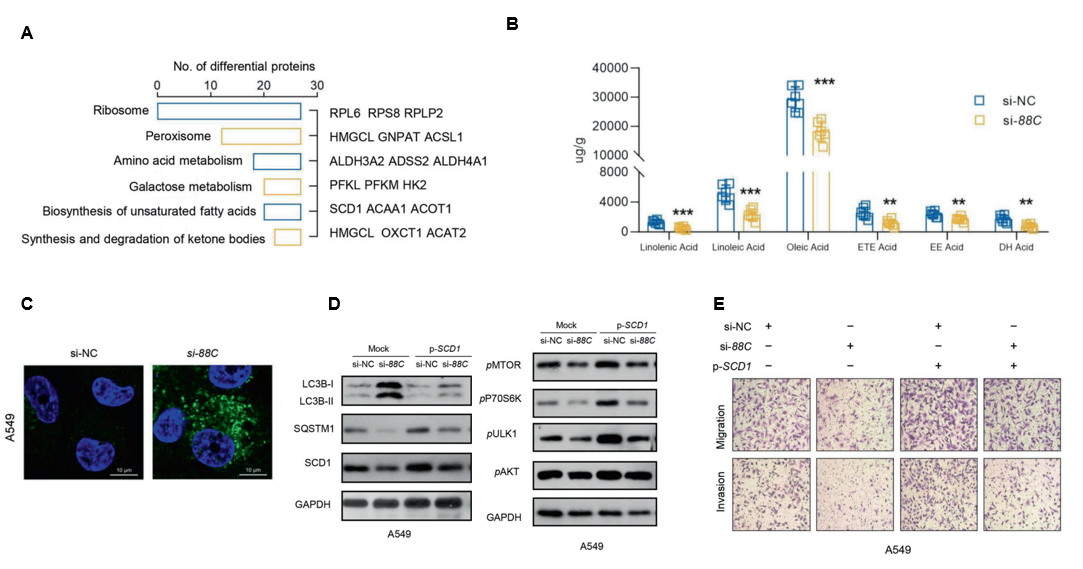
图3:功能机制研究,SNORD88C影响脂质积累和过氧化进而影响自噬和肿瘤转移侵袭。
四、在翻译层面经 28S rRNA 修饰增强 SCD1。snoPY 数据库预测 SNORD88C 靶向 28S rRNA 并在 C3680 位添加 2′-O-甲基化修饰(图4A);RTL-P 实验证实敲除 SNORD88C 会抑制该位点的修饰(图4B);Polysome profiling 与 qPCR 显示沉默 SNORD88C 后 SCD1 mRNA 在 polysome 与 monosome 组分中的富集明显下降(图4C),蛋白水平同步降低(图4D)——也就是说,它是在翻译层面调控 SCD1。
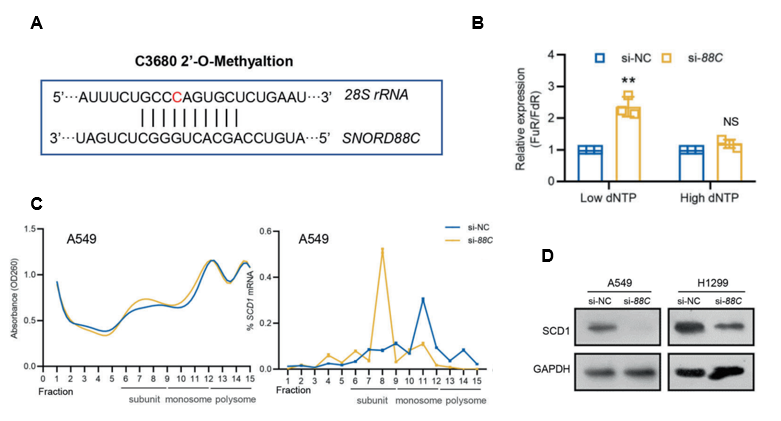
图4:机制研究,SNORD88C通过介导28S rRNA 2’-O-me修饰进而促进SCD1翻译。
这项工作的意义
研究把 SNORD88C 与 NSCLC 的诊断和机制两头都串了起来:一方面它从血浆样本中即可检出、在疾病早期就升高,可作为非侵入性标志物;另一方面它通过引导 28S rRNA C3680 位的 2′-O-甲基化、促进 rRNA 成熟,增强 SCD1 的翻译,抬升 MUFA 与脂质积累、抑制自噬并激活 mTOR,推动肿瘤生长与转移。这条链路为 snoRNA 调控 NSCLC 提供了新的机制解释。